细胞的内膜系统
文集 医学分子细胞遗传基础 共 17 篇
目录
内膜系统 Endomembrane System
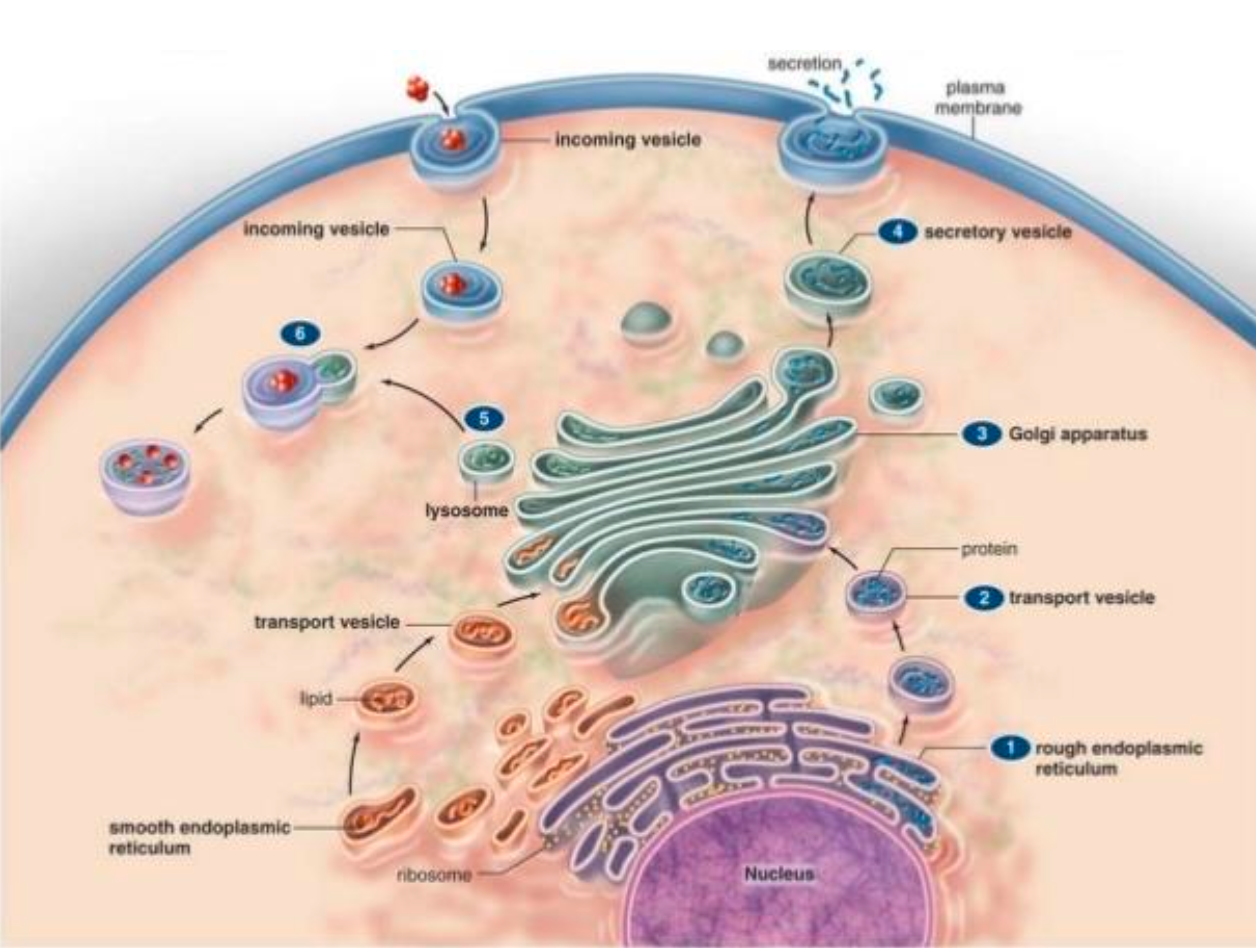
内膜系统的概述
- 真核细胞特有的、完成细胞各种复杂生命活动所必需的结构(功能特点)
- 细胞质基质中由单位膜围成的膜性细胞器(结构特点)
- 狭义内膜系统主要包括:内质网、高尔基体、溶酶体、过氧化物酶体和其它各种模型小泡等
内膜系统出现具有重要意义
- 增加了膜的表面积:有利于酶的分布和代谢反应高效率地进行
- 细胞质区室化Compartment:彼此之间互不干扰,有利于特定的代谢反应在特定环境中进行
- 相互联系:各细胞器之间以及细胞器与基质之间相互依存,高度协调地进行各种细胞内代谢过程和生命活动
第一节 内质网 (endoplasmic reticulum, ER)
一、内质网的形态结构和类型
内质网的形态结构:三种形态
- 扁囊:表面粗糙,平行排列呈板层状,彼此相互沟通,囊腔宽约50nm。
- 小泡:球形,常单独存在,直径40~500nm。
- 小管:表面光滑,有分枝,呈管状,管径50~100nm
内质网的类型:
- 粗面内质网(rough endoplasmic reticulum, RER),又称为颗粒内质网
- 特点:形态上多为平行排列的扁囊构成;核糖体以多聚体的形式附着在内质网膜上。
在RER膜上特有两种核糖体亲和蛋白或结合蛋白(Ribophorin I&II),均为跨膜蛋白,具有把核糖体牢固地结合在ER膜上的作用

在分泌活动旺盛的细胞中,RER特别丰富;
− 胰腺外分泌细胞、浆细胞、甲状腺滤泡上皮细胞

在分化较完善的细胞,RER发达,而未成熟或未分化好的细胞,RER则不发达
因此RER的发达程度,可作为判断细胞分化和功能状态的形态指标。
-
滑面内质网(smooth endoplasmic reticulum, SER),又称为无颗粒内质网
- 特点:形态上多为分枝的小管组成的网状结构;
- 膜表面无核糖体附着;
- 在一些细胞中滑面内质网非常丰富。
- 分泌甾类激素的细胞、汗腺细胞、胃壁细胞、肌细 胞中的肌质网
二、内质网的化学组成
ER的化学组成成分鉴定的经典实验:蔗糖密度梯度离心法分离RER和SER
- (粗面结合核糖体、比重较大,在下层)
化学组成: - 膜脂:主要是磷脂,约占干重的30~40% - 膜蛋白:约占干重的60~70%,主要是酶和结构蛋白。 - 粗面内质网的标志:核糖体 - 滑面内质网的标志酶:细胞色素P450
三、内质网的功能
粗面内质网的功能:
- 主要合成蛋白质
- 合成蛋白质的种类有:
- 分泌蛋白:包括消化酶、抗体、肽类激素和细胞外基质等;
- 膜整合蛋白质:包括镶嵌在ER膜、高尔基体膜、溶酶体膜以及质膜上的蛋白质;
- 膜限区室内的驻留蛋白retention proteins:包括ER腔内可溶性蛋白质和溶酶体酶蛋白等。
-
主要合成蛋白:
-
信号肽 (signal peptide):一般由15~30个aa残基组成,富含疏水性aa (Met, Leu, Phe等);由信号肽的N端、疏水核心区和信号肽的C端三部分。
- 疏水核心区易形成a螺旋,有利于与磷脂双分子层相互作用
- 信号肽在肽链成熟过程中常常被信号肽酶剪切。
- 作用:引导核糖体结合于ER膜,并使新生的多肽链插入ER膜进入ER腔。
-
信号识别颗粒 (signal recognition particle, SRP):细长形的RNA蛋白质;由6条多肽链和一个7SL (300bp) 的RNA组成,具有信号肽识别结构域和与核糖体A位点结合的结构域
- 作用:一方面与核糖体结合,另一方面与ER膜的SRP受体结合,通过其“桥梁”作用,使核糖体结合于ER膜上。
-
信号识别颗粒受体 (SRP receptor, SRPR):是ER的跨膜蛋白,含有α、β两个亚基。α亚基含有SRP的结合位点;β亚基以疏水序列锚定在ER膜上
- SRP与SRPR结合,使核糖体附着在ER膜上
- 核糖体则以大亚基的侧面与ER膜上的核糖体亲和蛋白 (ribophorinsI&II)结合,加强了核糖体与ER膜结合的稳定性
- 转位子(translocon)
- 哺乳动物细胞的转位子为Sec61复合体
- 装配成“面包圈样”的结构,属跨膜蛋白
- 新生的多肽链穿过其充满液体的孔道进入ER腔
- 信号肽跨膜的能量来源
- 信号肽穿过ER膜并引导新生的多肽链进入ER腔中是需要耗能的。
- SRP和SRP受体可结合GTP并具有GTP酶的活性。
-
- 合成蛋白质的种类有:
可溶性蛋白翻译共转位过程 - 多肽链是一边合成一边从胞质转运到ER腔,把这种边翻译边转运的过程称为翻译共转位(cotranslational translocation)。 - 蛋白质在RER合成后,再以囊泡的形式,经高尔基体加工、修饰成熟后再分泌到细胞外。
跨膜蛋白的翻译共转位过程:
- 单次跨膜蛋白(signal transmembrane proteins)
- I型:肽链中含有一个N端的信号肽和一个肽链内部的止步锚定序列(Stop-transferanchor sequence, STA),为疏水性肽段;N端位于ER腔侧,C端位于细胞质侧;
- II型:SA序列之前的N端带有正电荷,C端带有负电荷;N端位于细胞质侧,C端位于ER腔侧
- III型SA序列之前的N端带有负电荷,C端带有正电荷;N端位于ER腔侧,C端位于细胞质侧
- III型膜蛋白的拓扑结构(topological structure) 与I型膜蛋白相同,不同的是决定其跨膜蛋白的信号序列不同。
- 多次跨膜蛋白(multiple transmembrane proteins)
- IV型:在合成的蛋白质序列中含有多个SA和STA
- 第一个为SA序列,被SRP识别并跨膜转位同时发挥锚定作用;
- 第二个为STA序列,只发挥锚定在膜上的作用;第三个是SA序列,第四个为STA序列;
- 通过SA与STA序列交替,将新合成的肽链在翻译过程中形成多次跨膜的拓扑结构。
- 对蛋白质进行加工、修饰(主要是糖基化修饰)
RER合成的可溶性蛋白质和跨膜蛋白质大部分都需要进行糖基化修饰。
蛋白质的糖基化(glycosylation):是指肽链的特定aa残基接受共价连接的糖基形成寡糖链的连续过程
- N-连接的糖蛋白
- Asn残基的氮原子(-NH2)与N-乙酰氨基葡萄糖的寡糖链共价结合形成β-糖苷键的糖蛋白;
- 糖基化位点:Asn-X-Ser/Thr
- 糖基化过程开始于ER腔,完成于高尔基体。
- O-连接的糖蛋白
- Ser/Thr残基中的-OH氧原子与N-乙酰氨基半乳糖寡糖链共价相连形成α-糖苷键的糖蛋白;
- 糖基化位点:GalNAc α→Ser/Thr
- 糖基化过程全部或主要在高尔基体内完成。
高尔基体的标志酶:糖基转移酶
- 对新生多肽链进行折叠和组装的作用
分子伴侣(chaperons):在蛋白质折叠和组装过程中起着非常重要的作用;能识别正在合成或部分折叠的多肽链,帮助这些多肽链进行正确的折叠和组装,但其本身并不参与终产物的形成。
- N-连接糖基化蛋白作为分子伴侣
- 钙连蛋白 (calnexin)
- 肌网蛋白 (calreticulin)
- 重链结合蛋白作为分子伴侣
- 重链结合蛋白 (heavy-chain binding protein, BiP)
- 蛋白质二硫异构酶作为分子伴侣
- 二硫异构酶(protein disulfide isomerase, PDI)
- 参与膜脂的合成与转运
- 膜脂的合成与转运:磷脂酰胆碱 (phosphatidyl choline,PC)
滑面内质网的功能:
- 不同类型的细胞SER的功能不同
- 类固醇激素(甾体类激素)的合成
- 脂肪的合成与运输
- 糖原代谢
- 解毒作用
- 钙的储存和释放
- 胆汁生成
四、内质网的应激
内质网应激(endoplasmic reticulum stress, ERS)
- 当细胞受到外界各种理化因素刺激(紫外线、缺氧、营养物质缺乏、病毒、氧化应激等),ER的稳态被打破,ER由正常状态转变为应激状态,称为ERS。
- 在应激状态下,随着错误折叠和未折叠蛋白在ER腔内大量聚集,分子伴侣Bip含量迅速增加, Ca2+平衡出现异常。
- 细胞通过激活未折叠蛋白反应(unfold protein response,UPR)等信号通路,直接指导和参与ER中异常蛋白质的降解和再折叠,维持ER内环境的稳定,实现对细胞的保护。是细胞内一种适应性机制。
- 持续或过强的ERS诱导细胞凋亡或坏死,造成组织损伤。
第二节 高尔基复合体 (Golgi complex)
一、高尔基体的形态结构和特征
在电镜下,高尔基体由三部分构成:
- 扁平囊 (Cisterna):扁平囊又称为潴泡:一般3~10平行排列在一起,称为高尔基堆 (Golgi stack)
- 凸面称顺面(cis face)或形成面或未成熟面,常靠近细胞核或内质网。
- 凹面称反面(trans face)或成熟面或分泌面 ,常靠近细胞膜。
- 大囊泡 (Vacuole)
- 直径100~500nm,膜厚8nm。
- 多见于扁平囊的反面,是由扁平囊末端膨大出芽形成。
- 大囊泡对所含分泌物有继续浓缩的作用,故又称为浓缩泡或分泌泡。
- 小囊泡 (Vesicle)
- 直径40~80nm,膜厚6nm。
- 多分布于扁平囊的顺面,是RER出芽脱落形成。
- 小囊泡载有RER合成的蛋白质成分,需要运输到高尔基体进行加工,故又称为运输小泡。
特征:
- 顺面高尔基网(cis-Golgi network, CGN)
具有蛋白质分选站的作用
- 大部分转入高尔基体中间膜囊
- 小部分蛋白质再反向运回到ER
- 运回ER的蛋白质C端具有KDEL信号序列(Lys-Asp-Glu-Leu),是ER驻留蛋白质的特有信号序列含有磷酸转移酶
- 高尔基体的顺面膜囊:
- 甘露糖苷酶:从糖链末端剪切甘露糖基的作用。
- N-乙酰氨基葡萄糖基转移酶:加上N-乙酰氨基葡萄糖
- 高尔基体的中间膜囊
- 甘露糖苷酶
- N-乙酰氨基葡萄糖基转移酶
- 高尔基体的反面膜囊
- 半乳糖基转移酶:催化半乳糖基向糖链转移
- 反面高尔基网(trans-Golgi network, TGN)
二、高尔基复合体的化学组成
- 从大鼠肝细胞分离的高尔基体,含有60%的蛋白质和40%的脂类;
- 高尔基体的特征酶:各种糖基转移酶是高尔基体的特征酶,如半乳糖基转移酶和唾液酸基转移酶等。
三、高尔基体的极性及鉴定方法
- 形态
- 扁平囊的顺面膜较薄,近似ER膜,囊腔小而狭,一般朝向细胞核;
- 随着顺面向反面过渡,膜也逐渐加厚,至反面膜与质膜近似;
- 从发生和分化的角度看,扁平囊可看作为内质网和质膜的中间分化阶段。
- 化学组成
- 膜脂的种类和数量介于质膜和ER膜之间;
- 反面的膜较顺面的膜含有更多的酶,能促使分泌物的浓缩、成熟。
- 溶酶体的酶就是在反面的囊泡中浓缩的,表明溶酶体就是在此区域装配的;
- 功能
- 从顺面到反面,不同的膜囊含有不同的酶
四、高尔基体的功能
- 参与糖蛋白的生物合成
- 参与溶酶体的形成
- 糖脂的生物合成
- 蛋白质结构的再加工
- 参与膜的转变
- 参与细胞的分泌活动
第三节 溶酶体 (lysosome)
一、溶酶体的一般特征
-
概念: 是由一层单位膜包裹、内含多种酸性水解酶类的囊泡状细胞器。能分解各种内源性和外源性物质,被称为细胞内的消化器。
-
形态:具有多样性和异质性
- 大小:一般在0.25~0.5 m;
- 底物:与底物结合,形态多样;
- 内含物:不同的溶酶体所含水解酶的种类不同。
-
溶酶体的酶:
- 到目前为止,已经发现有60多种酸性水解酶;
- 酶发挥活性的pH为3~6,最适pH为5;
- 酸性磷酸酶是溶酶体的特征酶
-
溶酶体的膜:
- 溶酶体膜上具有质子泵(形成酸性环境)
- 膜蛋白高度糖基化修饰(保护,抵抗酸性)
- 具有特异转运蛋白
二、溶酶体的类型
根据溶酶体是否与底物结合分为两种类型:
| 初级溶酶体 Primary Lysosome | 次级溶酶体 Secondary Lysosome |
|---|---|
| 不含作用底物、仅含水解酶 | 溶酶体与底物结合 |
| 没处于潜伏状态;尚未开始消化 | 内含水解酶、相应的底物以及消化后的产物 |
| 圆形或卵圆形,体积较小,直径为0.25~0.5 m | 形态不规则,体积较大 |
| 内含物电子密度均匀,不含有明显的颗粒物质 | 内含物常含有正在消化的颗粒或膜的碎片 |
根据溶酶体酶作用的来源以及消化程度,次级溶酶体又分为:
- 异噬性溶酶体(heterolysosome):其作用物为外源性物质,即外来异物、坏死组织、细菌等。
- 自噬性溶酶体 (autolysosome):其作用底物为内源性,即来源于细胞本身衰老或破损的细胞器(如线粒体、ER)和其它内含物(如糖原、脂类等)。
- 残体 (residual body):在消化作用的最后阶段,由于酶的活力降低或消失,残留一些不再被消化、具有一定电子密度的剩余物质称为残体。
- 脂褐素 (lipofusin)
- 髓样结构(myeline figure)
- 含铁小体(siderosome)
- 多泡体(multivesicular body)
三、溶酶体的形成
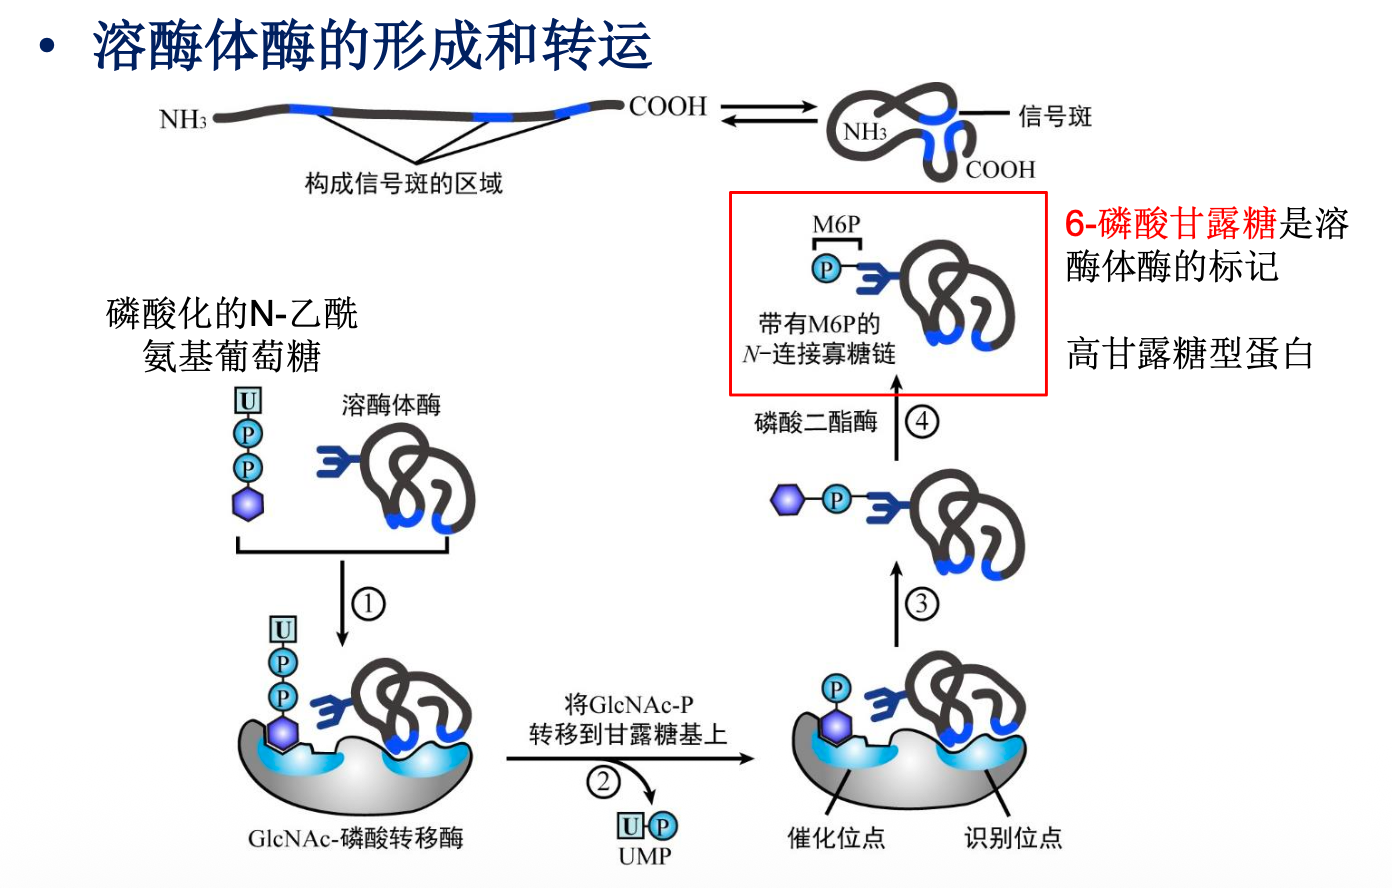
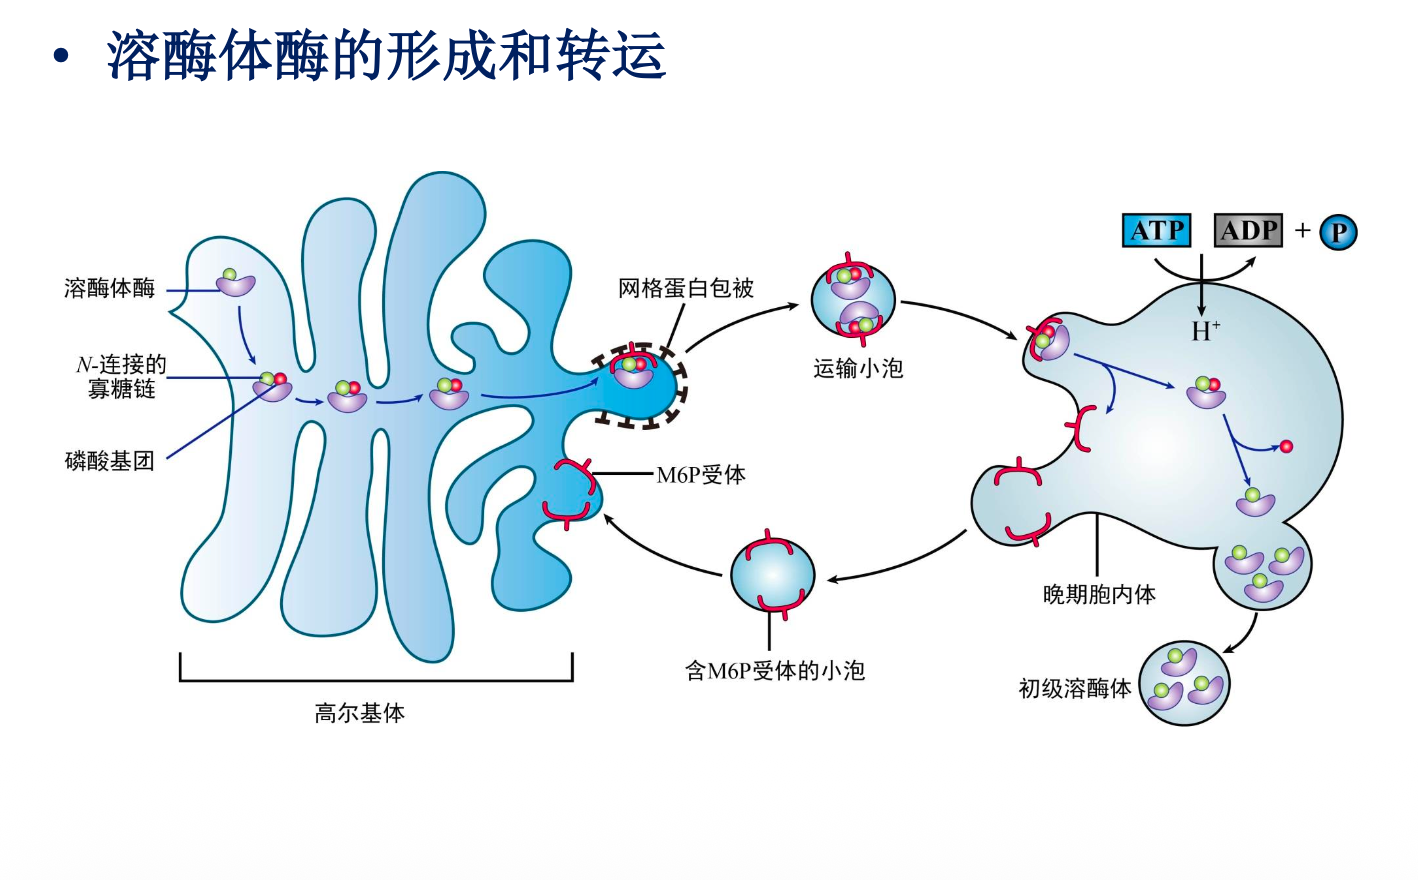
6-磷酸甘露糖标记
四、溶酶体的功能
a.溶酶体的消化、营养和防御作用
- 营养作用
- 消化外源性物质(产物为氨基酸、单糖脂肪酸 等)
- 消化内源性物质
- 脂类代谢(LDL-胆固醇)
- 防御作用
- 消除外源和内源有害因素
- 启动免疫细胞应答(巨噬细胞)
- 保护细胞免受炎症细胞破坏(中性粒细胞)
- 细胞新陈代谢自我更新
- 细胞自我保护机制
b.溶酶体在细胞外的消化作用 - 自溶作用 - 受精过程(精子的特化溶酶体“顶体”降解卵细胞表面)
c.溶酶体参与激素的调节 - 粒溶作用(垂体前叶细胞分泌泌乳素)
五、溶酶体与疾病的关系
- 先天性溶酶体病
- 溶酶体与矽肺
- 溶酶体与类风湿性关节炎
- 溶酶体与休克
- 溶酶体与肿瘤治疗
- 应用人工脂质体治疗先天溶酶体病
第四节 微体 (microbody)/过氧化物酶体(proxisome)
一、过氧化物酶体的形态、大小和数量
- 是一种特殊的细胞器,由单层膜包裹
- 内含多种氧化酶和过氧化氢酶
- 广泛存在于动、植物细胞中
二、过氧化物酶体的酶
- 氧化酶:RH2+O2——R+H2O2
- 催化底物产生过氧化氢
- 各种氧化酶约占酶总量的60%
- 过氧化氢酶:H2O2—R'H2——R'+H2O
- 将过氧化氢还原生成水
- 约占酶总量的40%
- 过氧化物酶体的标志酶
三、过氧化物酶体的功能
- 对有毒物质的解毒作用(过氧化氢、乙醇等)
- 对细胞氧张力的调节作用
- 参与脂肪酸的分解代谢(脂肪酸降解为乙酰辅酶A)
四、过氧化物酶体的发生
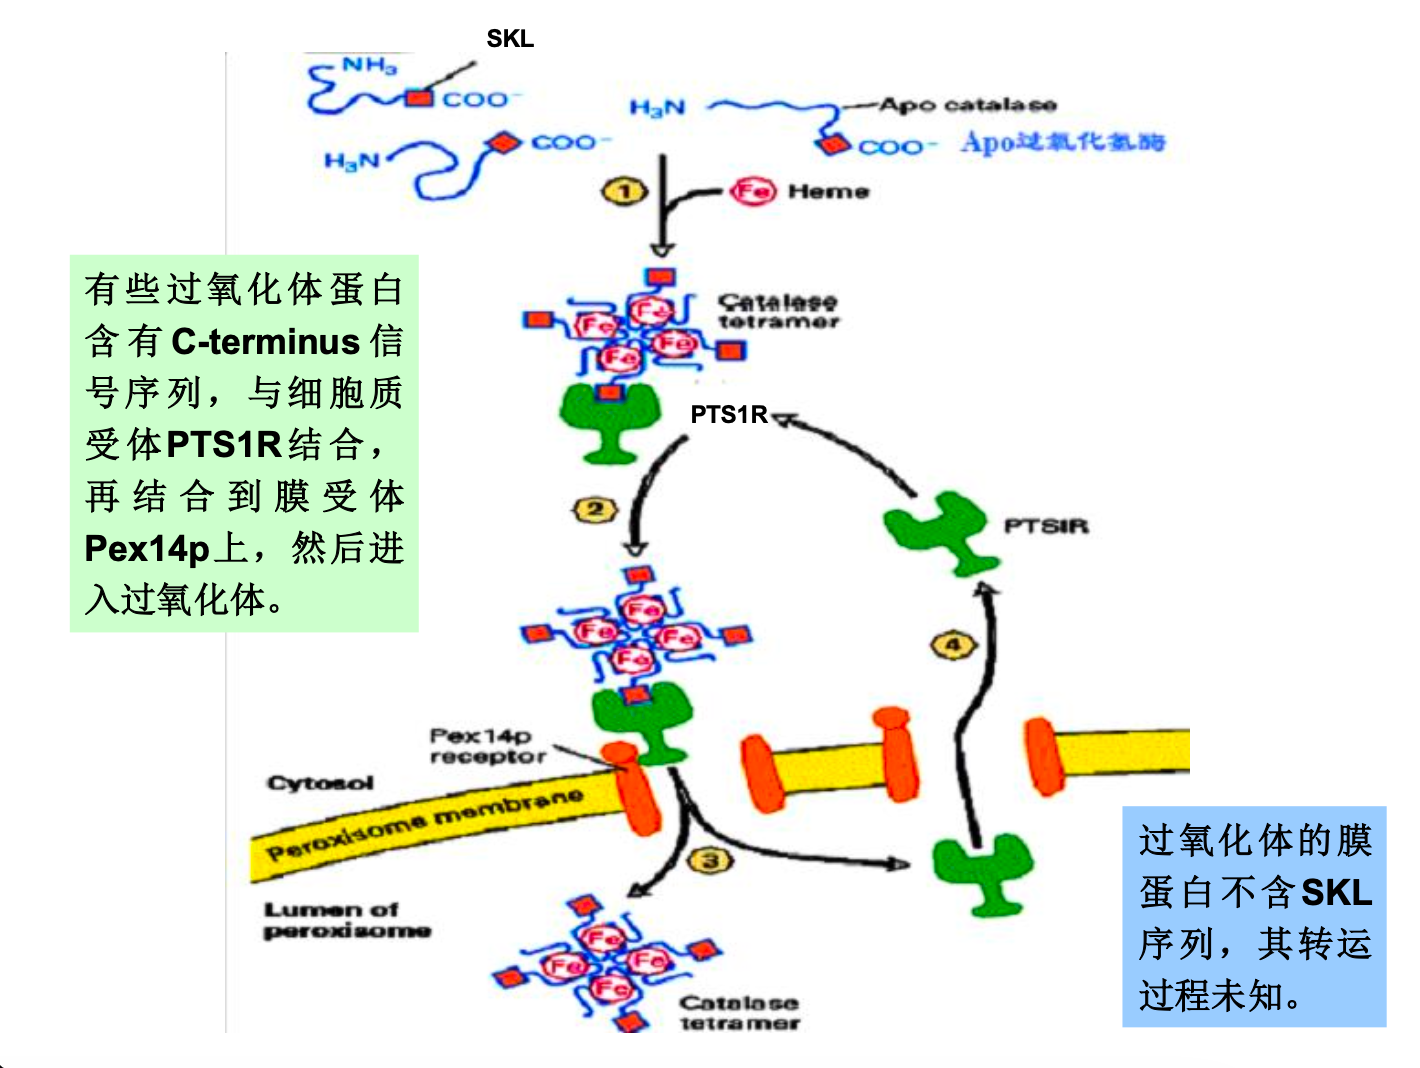
- 翻译后转位 (post-translational translocation)
- 游离核糖体合成,转运到过氧化物酶体
- C端特异性3肽序列SKL (-Ser-Lys-Leu-)