细胞骨架
文集 医学分子细胞遗传基础 共 17 篇
目录
概述
成分:微管、微丝、中间纤维
作用:有丝分裂过程中:
- 染色体均等分离:微管形成纺锤丝
- 细胞(质)分开:微丝
- 核膜的绷紧:中间纤维
肿瘤无限增殖:微丝(接触抑制)
肿瘤的转移;
细胞的外部形态与内部结构因环境变化不断调整细胞骨架的作用
戊二酸常温固定得到三维纤维网络结构系统,1963
活细胞成像结合图像处理技术观察到,细胞内的纤维的长度和分布不断改变,且其表面常附着一些细胞器或颗粒状物质随之定向移动。这种纤维状结构被称为细胞骨架(cytoskeleton)
概念:
- 广义的细胞骨架:包括细胞质骨架、和骨架、细胞膜及细胞外基质中的纤维状蛋白成分
- 和骨架 nuclear skeleton
- 细胞质骨架 cytoskeleton:指存在于细胞质内的蛋白纤维网架系统,成分microtubule、microfilament、intermediate filament,也称狭义的细胞骨架
- 细胞骨架的功能:维持细胞形态、承受外力
第一节 微管的结构与功能
一、微管的概念、结构和组成成分
基本概念:
- 微管是由微管蛋白tubulin和微管结合蛋白(microtubule-associated proteins,MAPs)组成的中空管状结构。
- 特点:对低温、高压、秋水仙素等药物敏感。
- 过程:从中心体发出,向细胞质延伸,通过组装和去组装完成细胞分裂等生理功能
- 功能:维持细胞形态、形成基体和中心粒等结构、负责物质运输、参与细胞分裂和信号传导等。
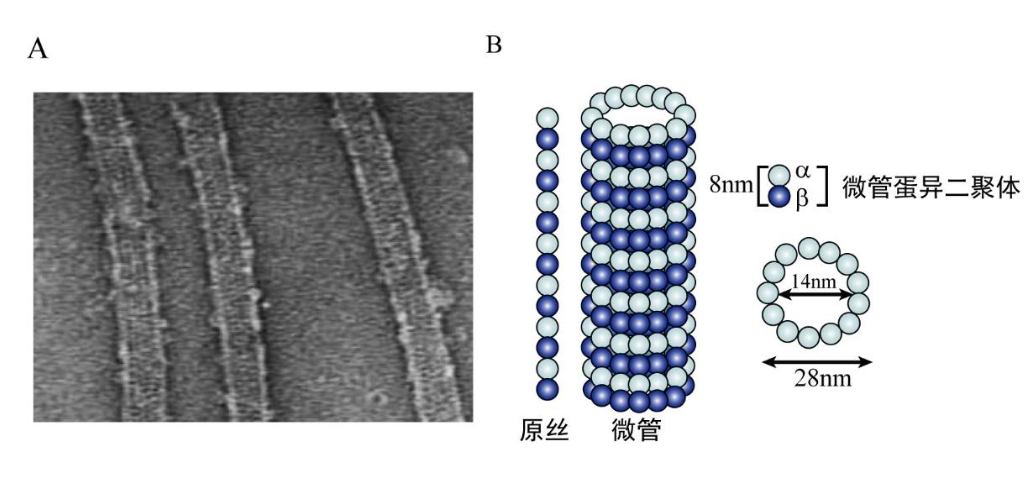
- 微管的结构
- 微管的主要组成成分
- 微管的形成依赖于微管蛋白tubulin的有序组装。
- 微管组装的基本单位是α-微管蛋白和β-微管蛋白形成的异二聚体,微管异二聚体首尾相接形成原纤维
所有的二聚体方向相同,
暴露β-微管蛋白的一端添加异二聚体的速度快,朝向正极。 暴露α-微管蛋白的一端添加异二聚体的速度慢,朝向负极
二、微管的相关蛋白
- 微管结合蛋白MAP
- 辅助微管组装、维持微管稳定、介导微管与其它微管或与细胞器相连接。
- 碱性微管结合区可加速微管成核,酸性突出区介导与其它微管或中间纤维相连接,形成交联,使微管成束排列。
- 微管马达蛋白motor protein
- 特点:与细胞骨架结合、具有AIP酶活性。
- 作用:通过水解ATP将化学能转变为机械能;为细胞内的运动提供动力,也可改变细胞的形态或维持细胞器的空间定位分布
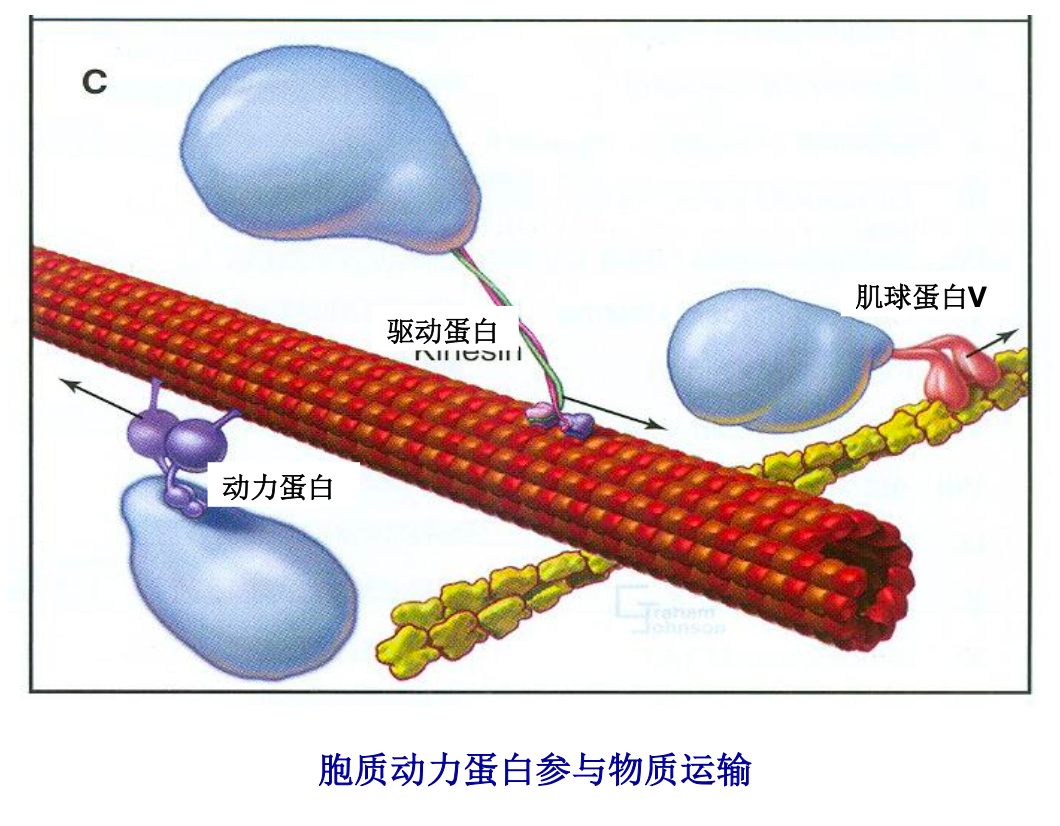
- 分类:驱动蛋白(kinesin)、动力蛋白(dynein)和肌球蛋白(myosin)家族
- 驱动蛋白和动力蛋白以微管作为运行轨道,沿微管运行货物。
- 肌球蛋白以微丝作为运行轨道。
-
驱动蛋白:两个球状头部,结合ATP,通过与微管结合,催化ATP水解使驱动蛋白沿微管移动,尾部负责运载货物。尾部与货物的结合需要驱动结合蛋白(kinectin)的辅助。
- 单个具两个头部的驱动蛋白分子能够以0.5µm/秒的速度沿微管运动很长的距离。
- 驱动蛋白的运动并不连续,每一“步”8nm,这正是微管中相邻二聚体之间的间距。
-
动力蛋白:动力蛋白超家族包括胞质动力蛋白和轴丝动力蛋白,前者以微管为轨道进行物质运输;后者参与鞭毛或纤毛的运动,称为纤毛或鞭毛动力蛋白。
动力蛋白臂异常和呼吸系统疾病:
kartagener综合症,反复出现呼吸道感染、精子鞭毛动力蛋白臂缺失而表现为男性不育
三、微管的组装与调节
- 微管的体外in vitro组装与调节
- 条件:37°C,pH 6.0,GTP,Mg2+,微管蛋白
- 单管组装过程:成核nucleation期、生长growth期、平衡equilibrium期
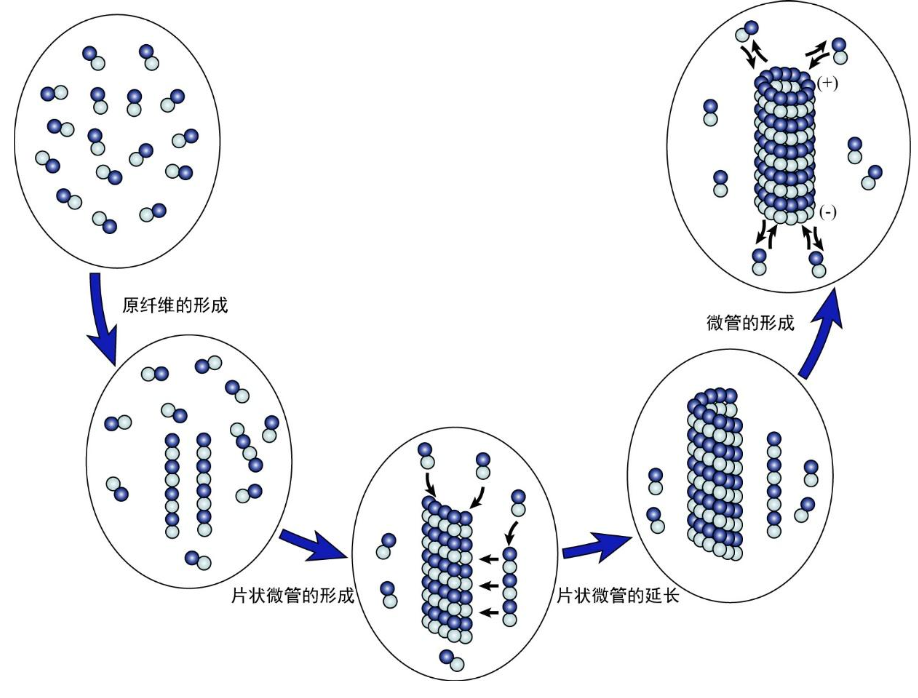
首先由二聚体形成短的原纤维(成核期),经过在两端和侧面增加二聚体而使之扩展成片状带,当片状带加至13根原纤维时即合拢成一段微管,新的二聚体不断聚合到末端上使之延长(生长期),长度不变时为平衡期。
- α-微管蛋白结合的GTP通常不发生水解,称为N-位点(nonexchangable site, N-site)
- β-微管蛋白结合的GTP可以水解,称为E-位点(exchangeable site, E-site)
- GTP异二聚体添加速度 versus GDP异二聚体脱落
2.微管的体内in vivo组装与调节
- 微管组织中心是微管装配的起始点
- 微管组织中心(microtubule organizing center,MTOC)是细胞内微管组装起始点
- 促进微管组装的成核过程,控制微管发生的数量、位置和方向。在动物细胞内
- 主要位于中心体、纤毛和鞭毛的基体、上皮细胞的游离面以及高尔基体复合体的反面网状结构等部位。
- 微管的组装启始于MTOC周围的γ-微管蛋白及其结合蛋白形成的环状物(γ-TuRC)(正极朝外、负极朝向微管组织中心
- 灾变与修复
- 影响微管装配的因素
包括微管蛋白浓度,温度,pH值,离子强度,细胞周期时相,应激条件等等
特异性药物对微管组装的影响: 微管蛋白二聚体能结合几种具治疗作用的植物碱和合成的化学物质
- 秋水仙素:能结合到游离的微管蛋白二聚体上,降低其结合到微管末端的亲和力而抑制微管聚合。
- 长春新碱:与游离的微管蛋白二聚体结合,而使微管解聚。
- 诺考达唑(nocodazole): 结合到β-微管蛋白上,抑制微管的动态变化。
- 紫杉醇: 结合到β-微管蛋白上,防止微管蛋白亚基的解聚。
四、细胞内微管的存在形式
| 存在方式 | 原纤维数 | 稳定性 | 分布 |
|---|---|---|---|
| 单管 | 13 | 不稳定 | 胞质、纺锤体 |
| 二联管 | 13+10 | 稳定 | 纤毛、鞭毛的杆部 |
| 三联管 | 13+10+10 | 稳定 | 纤毛、鞭毛基部、中心粒 |
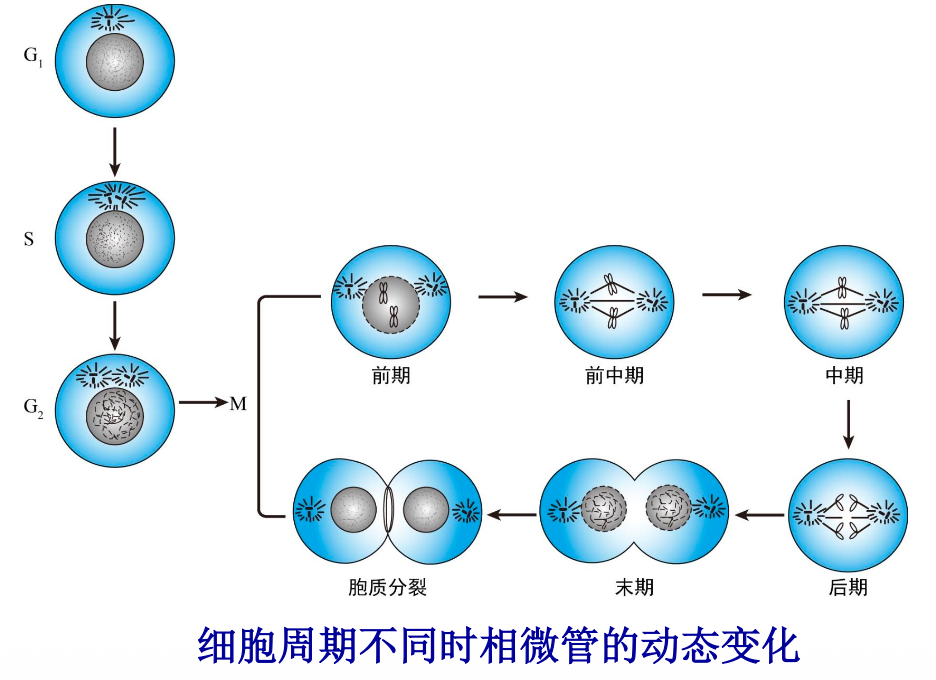
1.单管微管: 不稳定、随细胞周期发生变化
- 间期:微管自核发出,向核四周伸展 止于细胞质膜;或延伸至细胞伪足。
- 有丝分裂期:新组装的微管形成纺锤丝,在赤道板中央把染色体拉向两极;细胞分裂后,纺锤丝消失。子细胞出现新组装的微管。
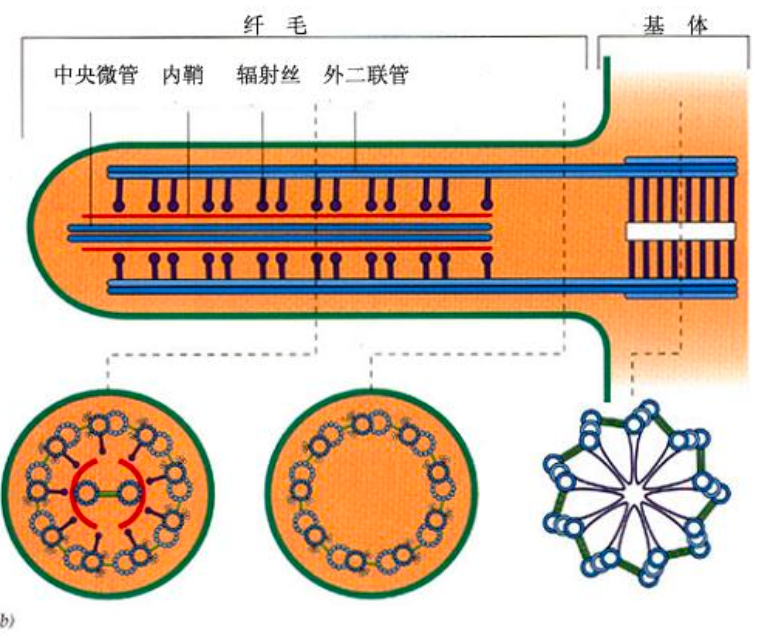
2.二联管和三联管(13+10/13+10+10): 存在于纤毛和鞭毛中的微管二联体结构以及中心体和基体中的微管三联体结构。
- 细胞表面特化结构中的微管
- 纤毛
- 中心体centrosome
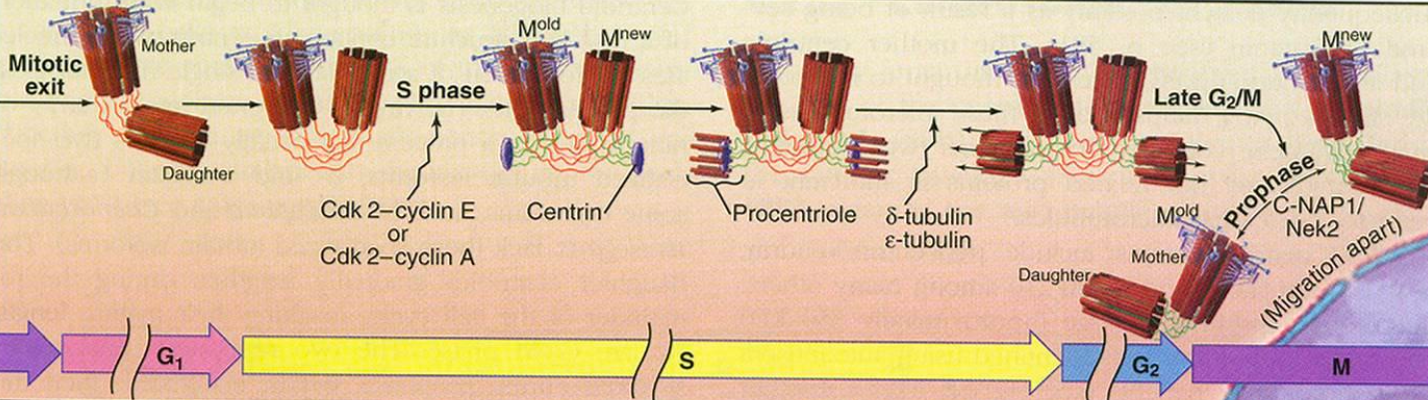
- 包括两个处置排列的中心粒和中心粒周围组织;半保留形式进行复制;参与细胞的分裂
- 中心粒centriole结构:由九个三联体微管组成长0.5um、直径0.2um的圆柱体。两组中心粒承兑存在且互相垂直。周围中心粒周围基质
- 中心粒周围基质:γ微管蛋白环状复合物和大量基质蛋白
- 中心体复制:
五、微管的功能
-
构成细胞内的支架,维持细胞形态和细胞器的分布与定位
-
参与物质运输
包括膜泡和囊泡、细胞器、色素颗粒、生物大分子与复合物、特殊物质的运输
- 参与细胞的有丝分裂
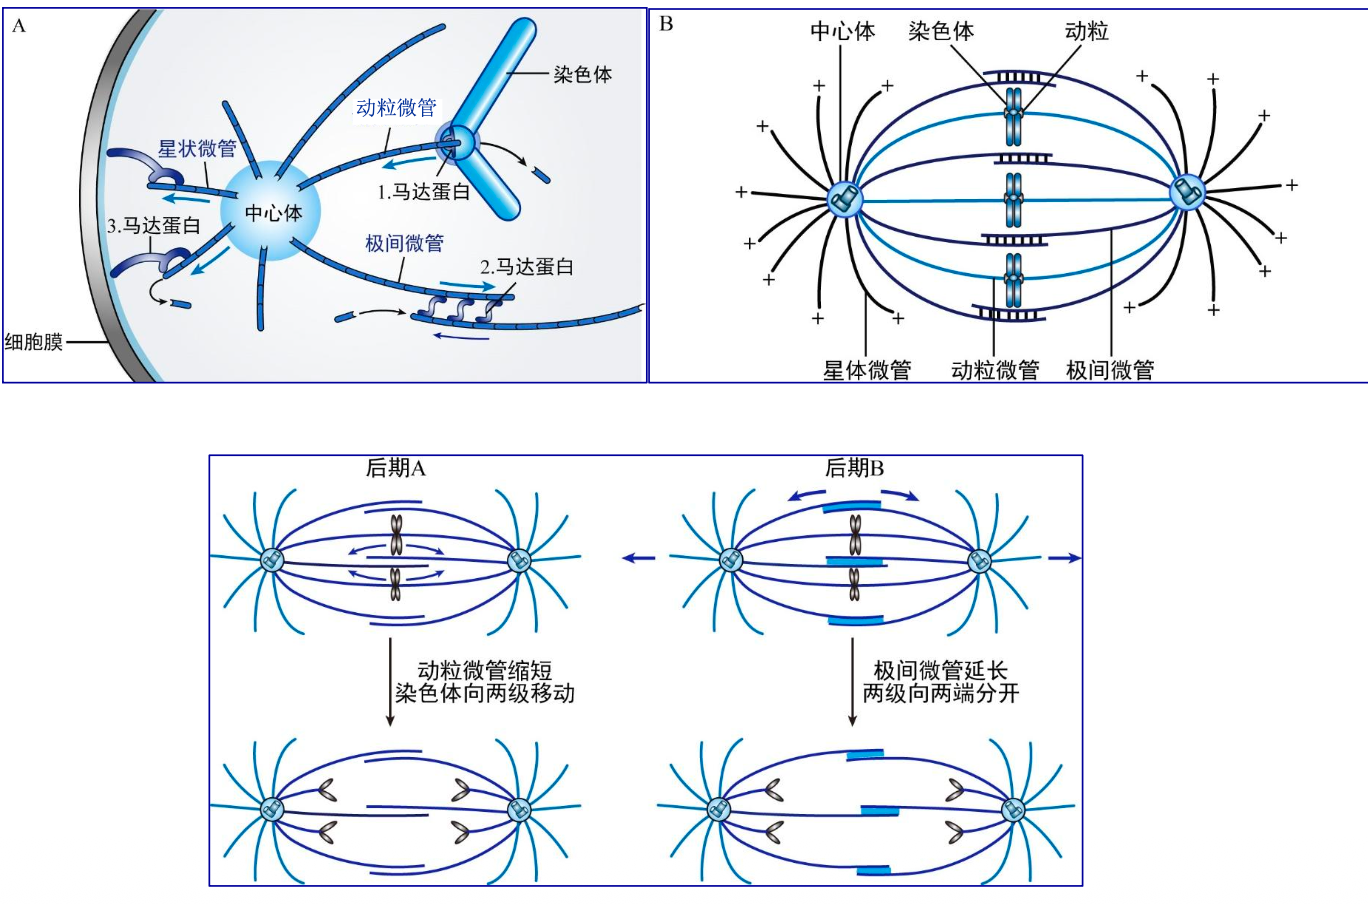
极间微管:端侧相连,聚合延长,增大中心体间距离,使分开(后期B);
动粒微管:连接动粒(着丝粒),解聚缩短,将染色体分开(后期A);
星体微管:与细胞膜结合
中心体异常与肿瘤:
乳腺癌、肺癌、卵巢癌等肿瘤细胞中的中心体常发生数目增多活消失、长度改变、中心体错位、中心粒短柱状结构紊乱、中心粒周围基质过量等异常变化,多种中心体蛋白呈现高表达或异常磷酸化
- 参与细胞信号转导
- 正向运输:驱动蛋白沿微管向正极运输信号分子至细胞膜/突起,激活膜信号
- 逆向运输:动力蛋白沿负极将内吞的受体、活化的转录因子等运回细胞核、调控基因表达
- 参与鞭毛和纤毛的运动
- 其他功能:参与细胞吞噬、细胞融合等过程
作用在微管上的药物:
- 长春碱和紫杉醇:干扰中期纺锤体的形成;阻止细胞分裂、治疗恶性肿瘤
- 秋水仙碱:抑制微管组装、抑制纺锤体功能;同步化M期、抗肿瘤化疗药物、治疗痛风
- 诺考达唑:通过结合游离的微管蛋白二聚体,抑制微管聚合;阻断于M期,多用于诱导细胞同步化
有丝分裂灾难mitotic catastrophe
第二节 微丝的结构与功能
一、微丝的概念、结构和组成部分
微丝microfilament,MF,ie张力蛋白丝
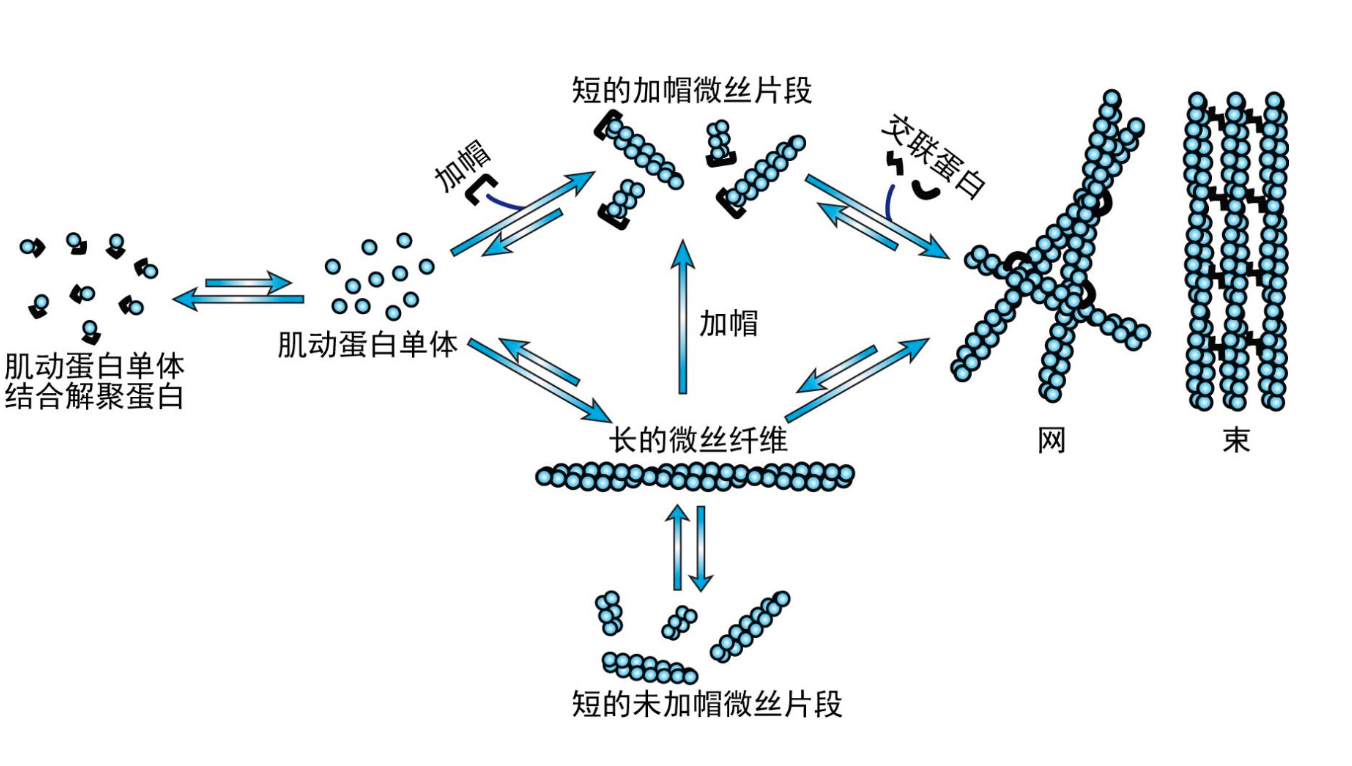
结构:由肌动蛋白通过头尾相接组装形成的双股螺旋状纤维,并可在微丝结合蛋白的辅助下形成分枝状、束状和网状结构
功能:参与形成微绒毛、张力纤维、细胞皮质、胞质收缩环和细胞伪足等结构;维持细胞形态、参与细胞迁移、肌肉收缩、胞质分裂等过程,同时参与物质运输。
组成:肌动蛋白actin,具有ATP位点,头尾相连为纤维状结构
-
游离状态—球状肌动蛋白(Globular actin, G-actin)
-
微丝中—纤维状肌动蛋白(Fibrous actin, F-actin)
二、相关蛋白
-
微丝结合蛋白
-
肌动蛋白单体结合蛋白
-
微丝末端加帽蛋白
-
微丝切割蛋白
-
微丝交联-成束蛋白
-
成核蛋白
-
侧面结合蛋白
-
衔接子蛋白
-
-
微丝马达蛋白
-
肌球蛋白 myosin:与肌动蛋白纤维结合,通过ATP酶活性将化学能转化为机械能,引起肌肉与应力纤维收缩、细胞内物质定向运动及细胞迁移等生命活动
- conventional myosin:肌球蛋白II
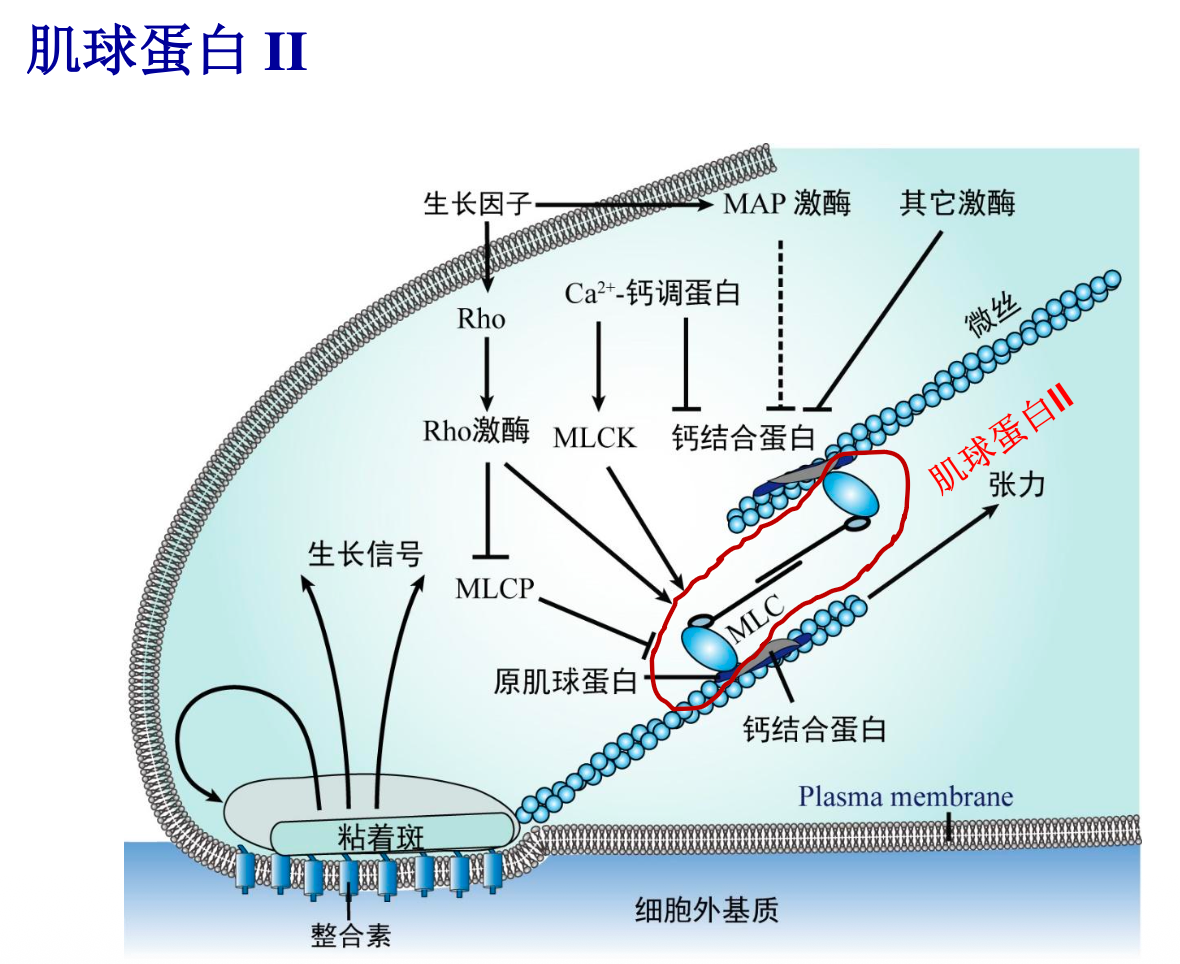
- unconventional myosin:肌球蛋白I、III、V - I:微丝和膜的连接 - V:物质运输
-
三、微丝的组装和调节
a.微丝的体外(in vitro)组装与调节:
微丝的体外组装分为三个时期:
-
成核期(Nucleation phase)
-
生长期(Growth phase)
-
平衡期(Equilibrium phase)
b.微丝的体内(in vivo)组织与调节:
微丝的体内组装复杂,受到多种微丝结合蛋白的调控,包括肌动蛋白形成微丝网状结构、微丝骨架与黏着斑的连接、肌动蛋白纤维与马达蛋白的作用等。
- 微丝结合蛋白对体内微丝组装的调节
微丝动态组装举例:血小板的激活涉及到微丝的剪切、去掉封端蛋白、微丝聚合延长以及交联的过程
- 影响微丝装配的因素
-
ATP;Mg2+、K+、Na+;
-
胞质松弛素B cytochalasin B:可切断微丝,并封闭F肌动蛋白的正极端阻止肌动蛋白的聚合; 加到活细胞中,肌动蛋白细胞骨架消失,细胞运动和细胞动力学受到抑制。 可抑制胞质分裂环,形成双核细胞。
-
鬼笔环肽 phalloidin:只结合于F肌动蛋白,结合到F肌动蛋白亚单位界面之间并且封闭相邻的亚单位 ,稳定微丝。荧光标记的鬼笔环肽常用于肌动蛋白纤维染色。
四、微丝在细胞内的存在形式
-
微绒毛 microvillus:是位于小肠上皮细胞表面大量的指状突起
-
应力纤维 stress fiber:由微丝与肌球蛋白Ⅱ相互作用形成的具有收缩功能的束状结构。
-
细胞皮层 cell cortex 与细胞伪足 pseudopodium:非肌细胞质膜下有由微丝网形成的一种凝胶层,由肌动蛋白纤维构成。为细胞膜提供强度和韧性,抵抗细胞内外压力,维持细胞形态,与细胞的多种运动有关。
-
黏着斑 focal adhesion:黏着斑通过质膜上的整合素integrin与细胞外基质相连接,在质膜内侧黏着斑与微丝相连。
-
胞质分裂环 cytokinesis ring:有丝分裂末期的胞质分裂期,两个即将分裂的子细胞之间产生一个由肌动蛋白和肌球蛋白形成收缩环,使两个子细胞分开。
五、微丝的功能
- 维持细胞形态和特化结构
- 参与细胞运动
- 参与胞质分裂
- 参与物质运输
- 参与肌肉收缩
- 其他功能
- 辅助受精、参与凝血、肿瘤转移等过程
- 参与细胞内信号传递
微丝主要参与 Rho 蛋白家族有关的信号转导。Rho 蛋白家族成员包括 Cdc42、Rac 和 Rho。
第三节 中间纤维的结构与功能
中间纤维 intermidiate filaments,IF:中间纤维直径约为 10 nm。其结构稳定、坚韧,不被高盐溶液或非离子去垢剂处理破坏。
一、中间纤维的概念、结构和组成成分
中间纤维:结构最复杂、最稳定、分布最广泛,在对抗外来机械张力中起作用。
结构:围绕细胞核组装,并延展到细胞边缘与质膜上的细胞连接如桥粒、半桥粒等相连,形成布满细胞质的网络。
组成:由中间纤维蛋白(intermediate filament protein)组成,该蛋白是由 N 端头部、杆状部和 C 端尾部三部分构成的长杆状蛋白。
根据IF蛋白分子序列的相似性和组织特异性,分为六类
- Ⅰ型和Ⅱ型:酸性和碱性角蛋白(keratin)在上皮细胞中特异表达。
- Ⅲ型IF蛋白:非上皮细胞型,包括:
- 波形蛋白(vimentin),来自中胚层的细胞表达;
- 结蛋白(desmin),肌肉细胞表达;
- 周边蛋白(peripherin),在外周神经系统神经元中表达;
- 胶质纤维酸性蛋白(glial fibrillary acidic protein),在中枢神经系统星形胶质细胞中表达。
- Ⅳ型IF蛋白:神经丝蛋白(neurofilament protein),主要分布在脊椎动物神经元轴突中。
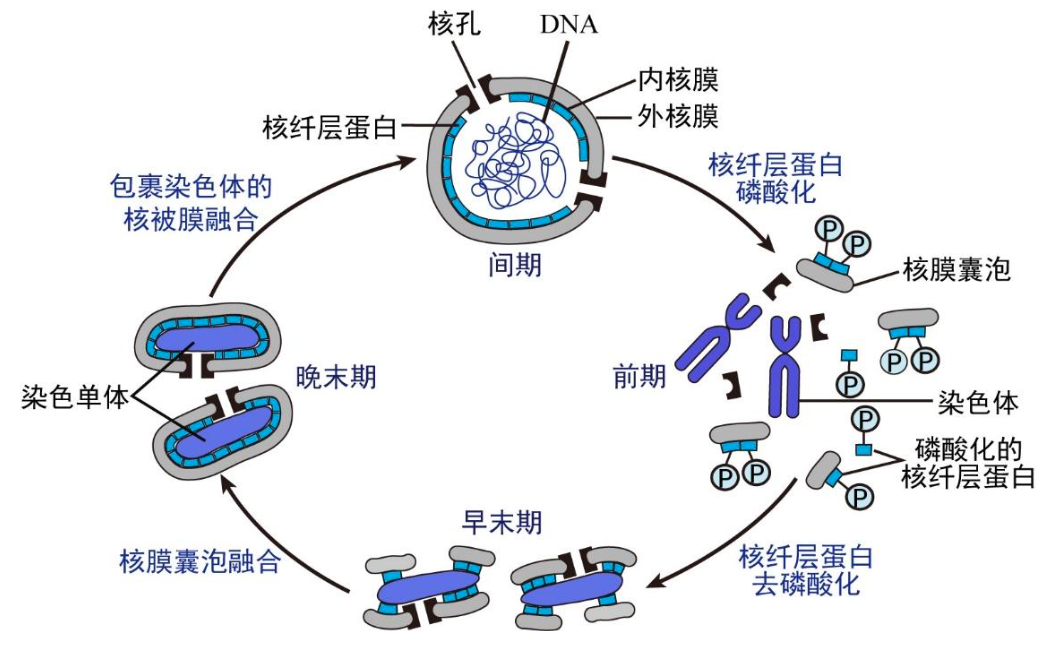
- 第Ⅴ型IF蛋白:核纤层蛋白(lamin),几乎所有细胞的细胞核中, 组成内核膜下的核纤层。
- 第Ⅵ型IF蛋白:巢蛋白(nestin),存在于神经干细胞与前体细胞中。
二、中间纤维结合蛋白
中间纤维结合蛋白(intermediate filament associated protein,IFAP)。
它们本身不属于中间纤维结构成分,是中间纤维结构的调节者,介导中间纤维之间或中间纤维与质膜等其他细胞结构的交联并形成特定的网络结构,参与表观遗传和信号转导。
- 核纤层蛋白 B 受体(lamin B receptor):位于各型细胞的内核膜上,具有交联核纤层蛋白与核膜的作用。
- 斑素蛋白(plakin):起到连接微丝和微管的作用。
- 锚蛋白(ankyrin):与波形蛋白和细胞膜连接。
- 大疱性类天疱疮抗原 1(bullous pemphigoid antigen 1,BPAG1):分布于复层上皮和神经元细胞,剪接异构体 BPAG1n 介导神经中间纤维与微丝的交联;BPAG1e 连接中间纤维与半桥粒。
- 网蛋白(plectin):与微管结合蛋白 MAP1、MAP2 及血影蛋白交联,使中间纤维蛋白彼此交联,并使质膜、微管和微丝相连。
- 核膜蛋白(emerin):分布于内核膜,起着稳定核膜、促进细胞分裂、染色质分离等过程。
- 桥粒钙黏素家族:分布于桥粒,交联中间纤维与致密斑。
- 丝聚蛋白(filaggrin):分布于角质化上皮,交联角蛋白,辅助角蛋白纤维聚集于皮肤的角质层
三、中间纤维的组装与调节
a.中间纤维的体外组装与调节:
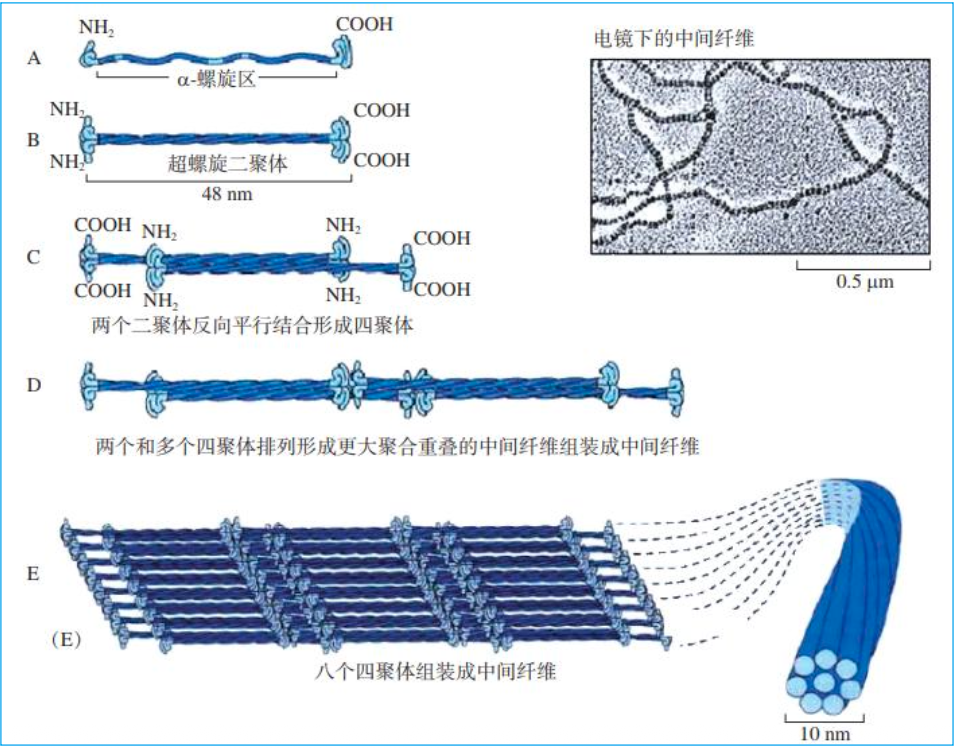
- 两个中间纤维蛋白单体(monomer)通过α螺旋杆状区的相互缠绕以平行对齐的方式形成超螺旋二聚体(dimer);
- 二聚体以反向平行、半分子交错形式组装成可稳定存在于溶液中的四聚体(tetramer),是中间纤维的基本亚基;
- 由8个四聚体侧向聚集成横截面为 32 聚体、长 60 nm 的等长纤维段(unit-length filaments,ULF)
- 互相缠绕最终形成1条横截面为32聚体的中间纤维。中间纤维呈绳索状,两端对称无极性,杆状区为核心,头尾部突出在外。
b.中间纤维的体内组装与调节:
中间纤维的组装与去组装过程受到中间纤维蛋白的磷酸化/去磷酸化、糖基化/去糖基化、乙酰化/去乙酰化等翻译后修饰的动态调控。
四、中间纤维的功能
- 中间纤维参与细胞抗挤压和拉伸
- 中间纤维稳定性高,具有很强的抗拉抻和抗剪切能力。防止过度挤压或拉伸造成损伤
- 中间纤维的支撑和稳定作用
- 通过内核膜的核纤层与核基质相连接,稳定核的结构;与微管和微丝相互联系,构成细胞完整的支撑网架系统。
- 中间纤维与细胞连接
- 中间纤维将细胞内的所有桥粒与半桥粒连成整体,加固细胞连接;上皮或表皮细胞内的中间纤维可从核膜延伸至桥粒或半桥粒的胞质斑处,从而参与细胞核的定位,并传递作用力,调控基因转录。
- 中间纤维与物质运输
- 中间纤维蛋白神经丝(neurofilament,NF)是轴突骨架的主要成分,可参与调控轴突直径的大小。在非神经元细胞中,可与微管、微丝及其马达蛋白等的相互作用,参与mRNA 等物质的胞内运输以及细胞器定位。
- 中间纤维与细胞分化
- 在胚胎发育的不同阶段,细胞表达不同类型的中间纤维蛋白。部分中间纤维蛋白(如巢蛋白)已被用于干细胞类型的鉴定及分化研究。
- 中间纤维在有丝分裂中的作用
- 在有丝分裂期,核纤层蛋白的磷酸化是核膜崩解的重要前提,如果该过程发生障碍,将导致已经复制的染色体不能分离。
- 中间纤维的其它功能
- 参与细胞内外的信号转导、调控基因转录和 DNA 复制等;与微丝相互协调,参与某些细胞表面的突起形成;中间纤维裂解是凋亡的关键分子事件,并与凋亡小体形成有关;与细胞应激相关。
第四节 细胞骨架异常与疾病
一、细胞骨架与细胞运动
- 微管与细胞运动
纤毛或鞭毛是其主要的运动装置,可以推动细胞在液体介质中向一定方向运动,实现吞噬或对环境变化的应答。例如:呼吸道上皮的运动;精子的运动。
- 微丝与细胞运动
在非肌细胞中,微丝参与细胞的多种运动形式,如变形运动、胞质环流、胞吞和胞吐作用等。
以两种不同的方式产生运动:
- 通过肌动蛋白和微丝结合蛋白之间的滑动机 制,如微丝与 肌球蛋白丝相互滑动;
- 通过微丝束的快速聚合和解聚实现细胞变形和移动。如单 核细胞、成纤维细胞、巨噬细胞、癌细胞等,多采用变形运动方 式进行位移。
二、细胞骨架与疾病
- 细胞骨架与呼吸系统疾病
Kartagener综合症:病人缺乏可见的动力蛋白臂,表现为:反复出现呼吸道感染;男性患者由于精子的鞭毛中动力蛋白臂缺失而表现为男性不育。
- 细胞骨架与神经系统疾病
Huntingtin蛋白以磷酸化方式调控神经元囊泡的顺/逆向轴突运输。磷酸化的Huntingtin蛋白可启动由驱动蛋白介导的顺向轴突运输;当Huntingtin蛋白去磷酸化时,启动由动力蛋白介导的逆向轴突运输。Huntingtin蛋白发生突变后,神经元内的囊泡转运发生紊乱,引发亨廷顿氏舞蹈病。
- 中间纤维与遗传性疾病
单纯性大疱性表皮松懈症:与角蛋白K5、K14的突变相关,突变导致上皮基底细胞结构异常,出现水疱症状。
- 细胞骨架与肿瘤
比如,中心体异常。乳腺癌、肺癌、卵巢癌等肿瘤细胞中的中心体常发生数目增多或消失、长度改变、中心体错位、中心粒短柱状结构紊乱、中心粒周围基质过量、等异常变化,多种中心体蛋白呈现高表达或异常磷酸化。
三、作用在细胞骨架上的药物
-
作用在微丝上的药物
-
鬼笔环肽:可利用异硫氰酸荧光素或罗丹明等荧光物质标记的鬼笔环肽与固定和透膜处理后的细胞孵育,在荧光显微镜下观察细胞内的微丝。
-
细胞松弛素:可通过封闭 F 肌动蛋白的正极端而使肌动蛋白纤维解聚。
-
鹅膏蕈碱(amanitine):结合于 G- 肌动蛋白,阻止G-肌动蛋白聚合到纤维末端上而抑制微丝组装。
-
-
作用在微管上的药物
-
长春碱/紫杉醇
-
秋水仙碱
-
诺考达唑
all as above