DNA损伤与修复
文集 医学分子细胞遗传基础 共 17 篇
目录
content
DNA损伤与修复:
- DNA损伤的原因
- DNA损伤的类型、修复方式及其病理生理学相关性
- DNA损伤应答与多种疾病
DNA损伤的原因
(一)DNA在生物体内的自发损伤
- 碱基的自发突变
- DNA聚合酶介导的碱基错配
- 细胞内代谢物导致的DNA损伤
(二)环境因素诱导的DNA损伤
- 物理因素——电离辐射,紫外线
- 化学因素——环境因素
- 生物因素
碱基的自发突变
- DNA在体外的自发损伤速率:Given are the numbers of altered nucleotides in a 3x10⁹ bp genome of double stranded DNA after 24h at 37°C.
DNA聚合酶介导的碱基错配
- 即便具备3’-5’外切酶活性,最终错配率仍在10-9-10-10左右
- 镁离子浓度不足,错配率更高
- 不具有3’-5’外切酶活性的DNA聚合酶导致的错配更多
物理因素 —— 电离辐射,紫外线
- 电离辐射致DNA损伤(DNA双链断裂)
- 紫外线辐射致DNA损伤
化学因素——环境因素
- 自由基导致DNA损伤
- 碱基类似物导致DNA损伤
- 碱基修饰剂、烷化剂导致DNA损伤
- 嵌入性染料导致DNA损伤
生物因素
- 生物因素主要来源于一些潜在的致瘤病原微生物,包括幽门螺旋杆菌;多种DNA病毒,如乙型肝炎病毒、人类乳头瘤病毒、EB病毒等
- 感染引起的DNA损伤的一个主要原因是组织慢性炎症导致氧化物过度释放
DNA损伤的类型及对应修复方式
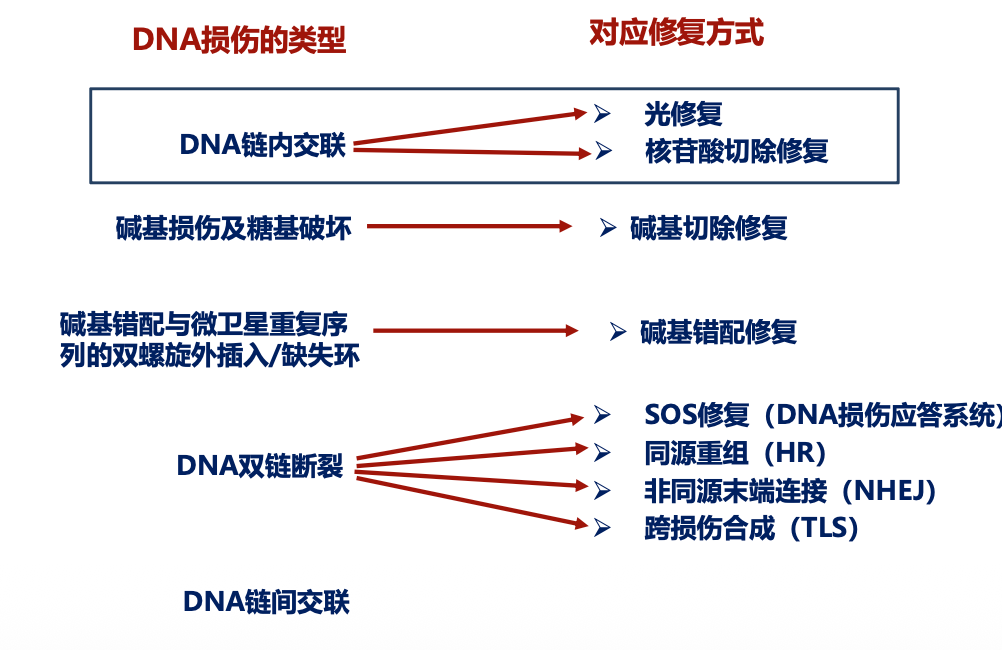
DNA链内交联(intrastrand crosslink)
经受UV照射的大肠杆菌可以有两种修复方式:
- 光修复:经受UV照射的大肠杆菌在可见光作用下可以“复活”
- 嘧啶二聚体的形成与光修复
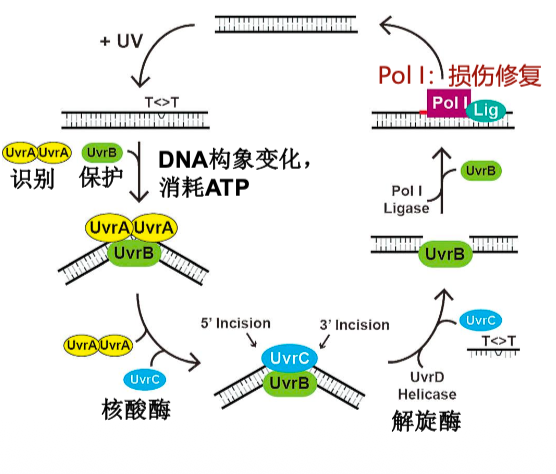
- 核苷酸切除修复:在无可见光情况下,大肠杆菌可进行葡萄糖依赖的嘧啶二聚体清除
- 细菌中嘧啶二聚体的核苷酸切除修复
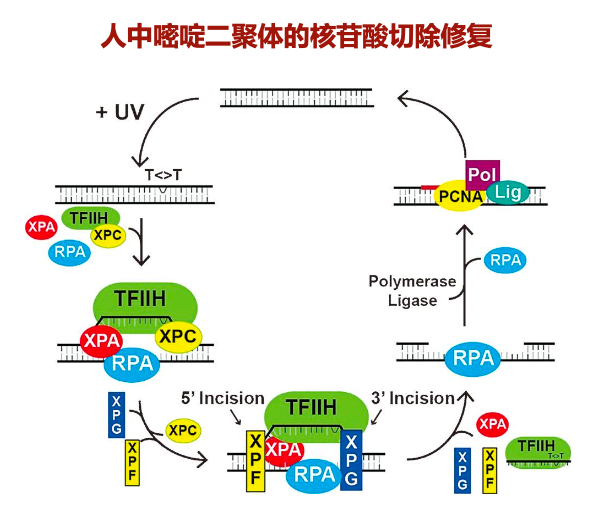
- XPA-XPG 等7个XP家族基因
- XPA和XPC:识别损伤位点,XPE参与特定类型嘧啶二聚体的识别与结合(细菌:UvrA)
- XPB和XPD:解旋酶功能,是TFIIH复合物的一部分(细菌: UvrD),原核先切再解旋,真核先解旋再切。
- TFIIH由7个蛋白组成的复合物,可以将其他成分理解为辅助亚基
- XPF和XPG:核酸酶活性切掉损伤侧的DNA单链(细菌:UvrC)
- RPA是哺乳动物细胞的单链DNA结合蛋白(细菌: UvrB)
- 平时参与DNA复制合成的Pol ε或δ可以填补空缺
碱基损伤及糖基破坏与碱基切除修复
Base excision repair, BER
碱基切除修复的步骤
- 每种糖苷酶(glycosylase)只能识别单个碱基的脱氨基或烷基化,水解糖苷键,目前已鉴定出人类的11种糖苷酶,大肠杆菌的8种糖苷酶。
- AP核酸内切酶将剩余的磷酸核糖切除。
- DNA聚合酶与连接酶合成缺口并补齐。
碱基错配修复
mismatch repair, MMR
- 与BER发生时间不同:
- DNA复制时——碱基错配修复;
- 非DNA复制时——碱基切除修复
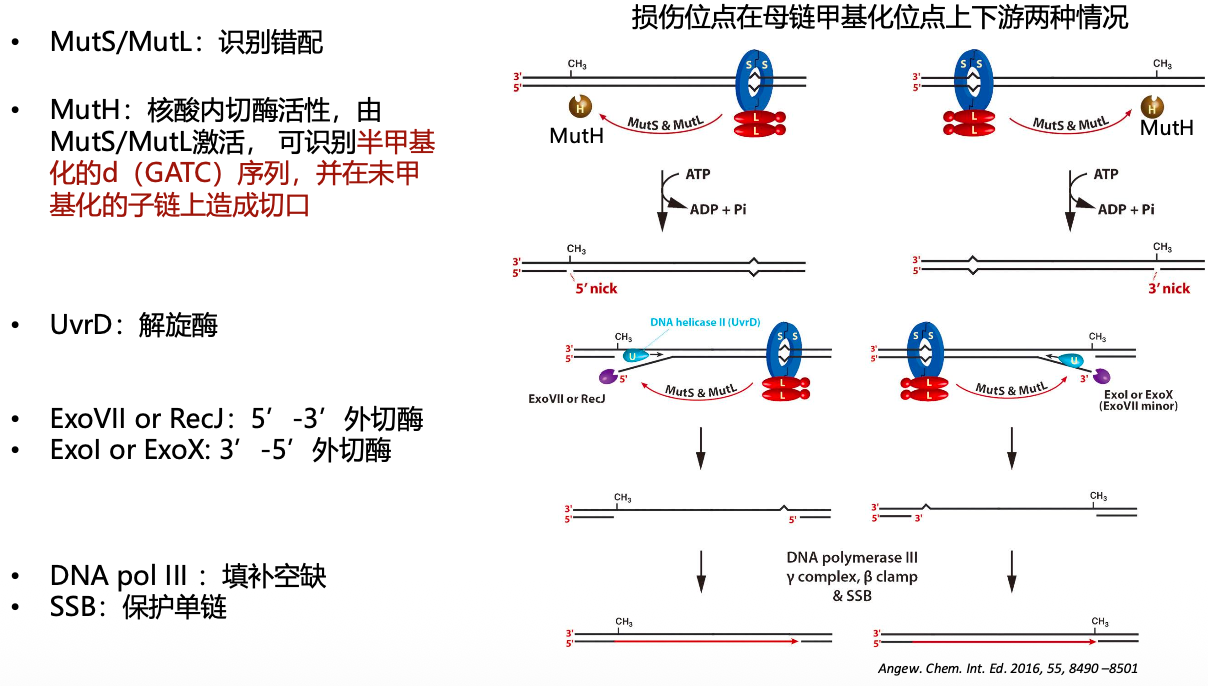
- 碱基错配修复方式都是在子链上进行切割
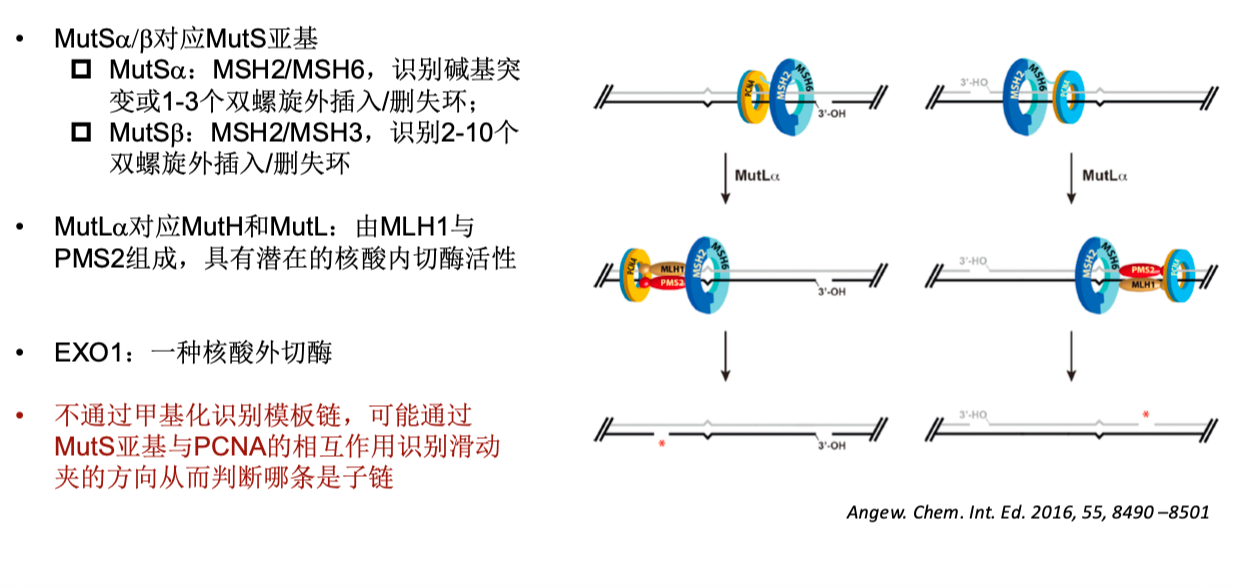
碱基错配修复:双螺旋外插入/删失环
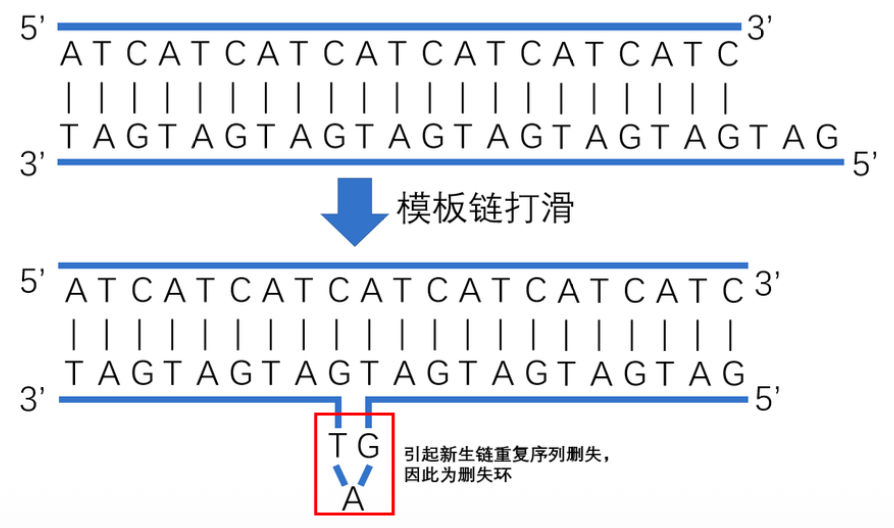
- 能够识别子链上的插入环或者母链上的删失环,
- 都是在子链上进行切割,细菌上是通过A上的甲基化识别母链
| MMR | BER |
|---|---|
| DNA复制过程 | 非DNA复制过程 |
| 区分DNA合成的模板链和子链 | 识别损伤的碱基 |
| 切掉错配碱基附近的DNA子链,合成填补 | 切掉损伤碱基,合成填补 |
碱基错配修复——大肠杆菌
碱基错配修复——人体内
DNA双链断裂
- 光修复、NER、BER和MMR适用DNA双链中的一条链发生损伤,而另一条链则完全完整
- DNA双链断裂不能用以上任何一种方式进行修复
- 生物体发生双链断裂等严重损伤之后,会启动DNA损伤应答这道最后防线。
- DNA损伤应答,包括对损伤信号的检查与信号转导、细胞周期抑制、复制叉稳定性维持、转录及翻译调控、DNA修复、
- 直至DNA损伤被重新修复,或积累过多DNA损伤的细胞发生衰老或凋亡
SOS修复-原核生物DNA损伤应答系统
- 这是一种常见于过去教科书的表述,但SOS其实并不是一种修复方式,而是一套DNA损伤反应系统。
- SOS修复系统是大肠杆菌遇到严重DNA损伤后所激活的DNA损伤反应系统
- 其核心是大肠杆菌重组酶RecA和转录抑制蛋白LexA,RecA与LexA结合后,引发LexA自水解,其转录抑制效应被解除。
- 常被提及的LexA相关反应蛋白包括RecA(同源重组修复相关)、 DNA聚合酶IV(跨损伤合成相关)和DNA聚合酶V (跨损伤合成相关)等。
真核生物-DNA损伤检查点
- 激活DNA损伤检查点,抑制细胞周期,避免将错误或损伤的遗传信息传递到子代细胞,是DNA损伤应答的首要步骤
- 细胞存在S期、G1/S以及G2/M3个主要的DNA损伤检查点
- 在哺乳动物中,DNA损伤检查点的激活主要由激酶ATM和ATR介导
- ATM:共济失调毛细血管扩张突变基因(ataxia telangiectasia-mutated gene),ATM磷酸化p53、CHK2、MDC1、BRCA1和53BP1等众多细胞周期阻滞蛋白及DNA损伤修复效应蛋白
- ATR:共济失调毛细血管扩张及Rad3相关(ATM- and Rad3-related)基因,ATR主要通过磷酸化CHK1介导S期检验点和G2/M检验点的激活,为DNA损伤修复争取足够的时间
DNA双链断裂相关修复
- 大肠杆菌:同源重组、跨损伤合成
- 人体内:同源重组、跨损伤合成、非同源末端连接
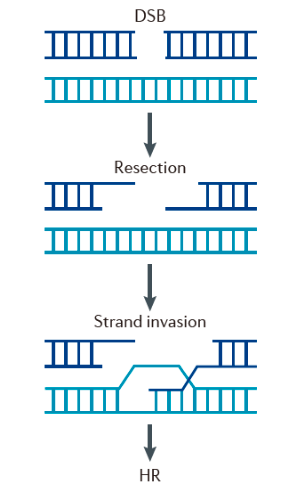
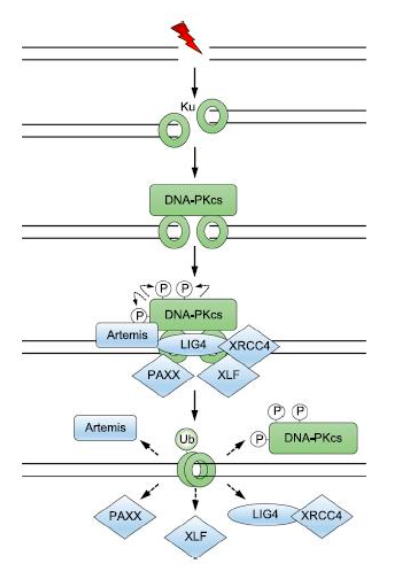
同源重组(homologous recombination,HR)
- 末端切除(resection),形成3’悬挂单链DNA(ssDNA)末端;
- 重组酶(recombinase)包被3’悬挂ssDNA末端,形成重组酶-ssDNA细丝(filament);
- 重组酶-ssDNA细丝寻找与这段ssDNA序列完全互补的对侧DNA分子,并侵入形成D环结构(D-loop);
- 利用完全互补的对侧DNA为模板,启动DNA合成,完成修复过程。
- 在真核生物中一般发生在S/G2期。(要求两条DNA距离近、时间限制)
非同源末端连接(non-homologous end joining,NHEJ)
- 步骤:
- Ku70/80蛋白加载到双链断裂DNA的两个末端;
- Ku70/80蛋白招募DNA-PKcs蛋白,DNA-PKcs通过结合两个断裂末端,把两个断裂末端的距离拉近;
- 继续招募NHEJ相关的下游共作用因子,包括LIG4、XRCC4、Artemis、PAXX和XLF等蛋白,实现两个断裂末端的连接。连接部分可能会有碱基缺失或者错误。
- 真核细胞特有的DNA双链断裂修复方式
- 完成V(D)J基因重排 & 免疫球蛋白重链类别转换重组
- G1期:NHEJ:HR = 50+ :1
- S/G2(复制的两个拷贝足够近):NHEJ:HR ≈ 1:4
- 在S/G2期BRCA1可以拮抗53BP1的功能,促进末端切除,抑制NHEJ的发生
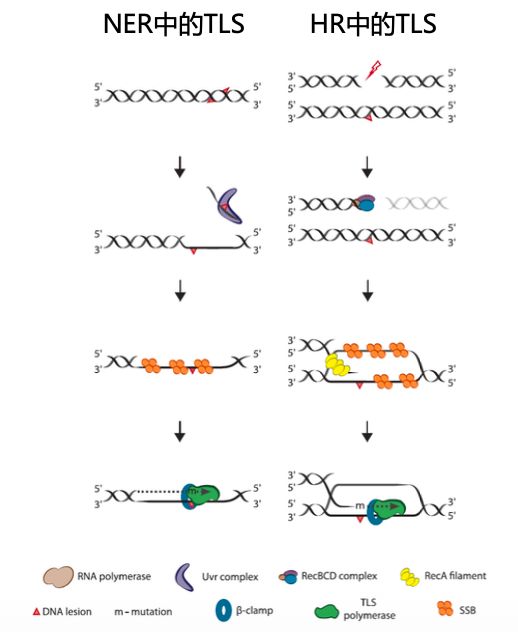
跨损伤合成(translesion synthesis,TLS)
- 特指一类忽略DNA损伤部位强行进行DNA合成的过程,其核心是非保真polymerase(TLSpolymerse)的参与,修复过程甚至引入更多碱基错配
- TLS还可以发生在除了双链断裂修复以外的其他修复场景中,如NER和DNA链间交联修复
- 大肠杆菌中,TLS相关DNA聚合酶通常是DNA聚合酶IV或V,而在真核细胞中则通常是Pol ζ
DNA链间交联
DNA双链间连接紧密(链间交联),解旋酶无法推进
- 范可尼贫血患者的外周淋巴细胞对DNA交联剂敏感
- 范可尼贫血:常染色体隐性遗传病,其主要表现为再生障碍性贫血,另外还表现出生育能力弱、先天性畸形以及造血系统癌症和鳞状细胞癌的易感性
- 已知有22个范可尼贫血的致病突变基因,主要致病基因包括有FANCA(65%)、FANCC(15%)和FANCG(10%),其他致病基因还包括HR相 关基因BRCA1、BRCA2(FANCD1)、PALB2(FANCN)和RAD51等
- 范可尼贫血是由于DNA链间交联无法在S期被修复导致的,这一修复过程非常复杂,至今还没有被完全阐明
DNA损伤应答与多种疾病
| 疾病 | 突变基因 | 主要表型 | 主要受影响的生物过程 |
|---|---|---|---|
| 林奇综合征 | MSH2/3/6,MLH1,PMS2 | 结直肠癌 | 错配修复 |
| 着色性干皮病 | XP | 对日光高度敏感,皮肤癌 | 核苷酸切除修复 |
| 遗传性乳腺癌卵巢癌综合征 | BRCA1,BRCA2 | 乳腺癌、卵巢癌、前列腺癌 | 同源重组修复 |
| 共济失调毛细血管扩张症 | ATM | 白血病、对γ射线高度敏感、基因组不稳定性 | DNA损伤应答 |
| 范可尼贫血症 | FA | 再生障碍性贫血、发育异常、肿瘤高发 | DNA交联损伤修复 |
| 布鲁姆综合症 | BLM | 免疫缺陷、日光敏感、肿瘤高发 | 同源重组修复 |
| 奈梅亨断裂综合症 | NBS1 | 免疫缺陷、肿瘤易感 | 同源重组修复 |
| 维尔纳综合症 | WRN | 早衰、2型糖尿病、骨质疏松、动脉硬化、肿瘤高发 | 同源重组修复、核苷酸切除修复、端粒结构维持 |
| 重症联合免疫缺陷 | RAG2 | T细胞、B细胞缺乏、严重免疫缺陷 | 非同源末端连接 |