RNA生物合成
文集 医学分子细胞遗传基础 共 17 篇
概述
dna vs rna
- 碱基
- 戊糖
- 结构
- 长度
遗传信息
- DNA是遗传信息的主要携带者
- 遗传信息:DNA分子中碱基的排列顺序
- 四种核苷酸:A、G、C、T
遗传信息传递的中心法则
Central Dogma of genetic information transfer
- 1957年由Crick提出
- 依据:DNA双螺旋结构的阐明;DNA聚合酶与RNA聚合酶的发现
- 指出了基因的两个基本特性:自我复制和指导蛋白质合成。
转录 transcription
转录出的RNA种类及作用
- rRNAs (Ribosomal RNAs) 75-80%:
- 以核蛋白体的形式参与蛋白质生物合成,是蛋白质合成的场所
- tRNAs(Transfer RNAs) 10-25%:
- 在蛋白质生物合成过程中转运氨基酸
- mRNAs (Messenger RNAs) 2-3%:
- 作为蛋白质合成的直接模板
- hnRNAs(heterogeneous nuclear RNAs)
- mRNA的未成熟前体
- snmRNAs(small non-messenger RNA)
- snRNA, snoRNA, scRNA, siRNA
- 参与RNA前体的加工及基因表达调控
RNA生物合成主要内容
- 原核生物转录的模板和酶
- 原核生物转录的过程
- 真核生物转录的过程
- 真核生物RNA的加工和降解
原核转录与真核转录有较大差异
第一节 原核生物转录的模板和酶
转录作用( DNA-dependent RNA synthesis)
- 在RNA聚合酶催化下,
- 以DNA为模板,
- 以4种三磷酸核苷(ATP, GTP, CTP, UTP)为原料
- 进行的RNA聚合反应。
参与转录的物质
- 原料: NTP (ATP, GTP, CTP, UTP)
- 模板: DNA的一条链(template strand)
- 酶: RNA聚合酶 (RNA polymerase, RNA-pol)
- 无机离子:\(Mg^{2+}\),\(Mn^{2+}\)
- 其他蛋白质因子
dna复制与转录的区别
- 模版:双链;模板链单链
- 原料
- 酶
- 产物
- 配对方式:AT/CG;AU,CG,TA
一、原核生物转录的模板
不对称转录(asymmetric transcription)
- DNA片段转录时,双链DNA中只有一条链作为转录的模板,这种转录方式称为不对称转录
- 模板链(template strand)、编码链(coding strand)
二、RNA聚合酶催化RNA合成
(一)RNA聚合酶能从头启动RNA链的合成
- 全称:依赖DNA的RNA聚合酶(DNA-dependent RNA polymerase)
- 简称:RNA pol
(二)RNA聚合酶由多个亚基组成
结构:
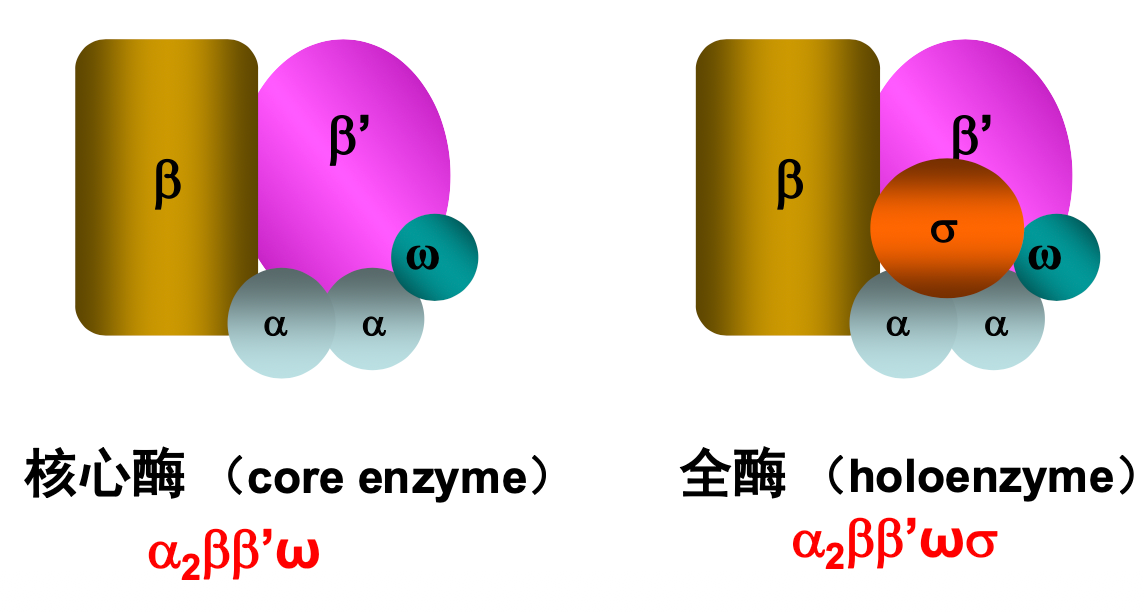
- 核心酶 core enzyme;全酶 holoenzyme
- 大肠杆菌RNA 聚合酶各亚基的作用
- σ亚基:辨认转录起始点(转录起始后脱落);核心酶/全酶区别
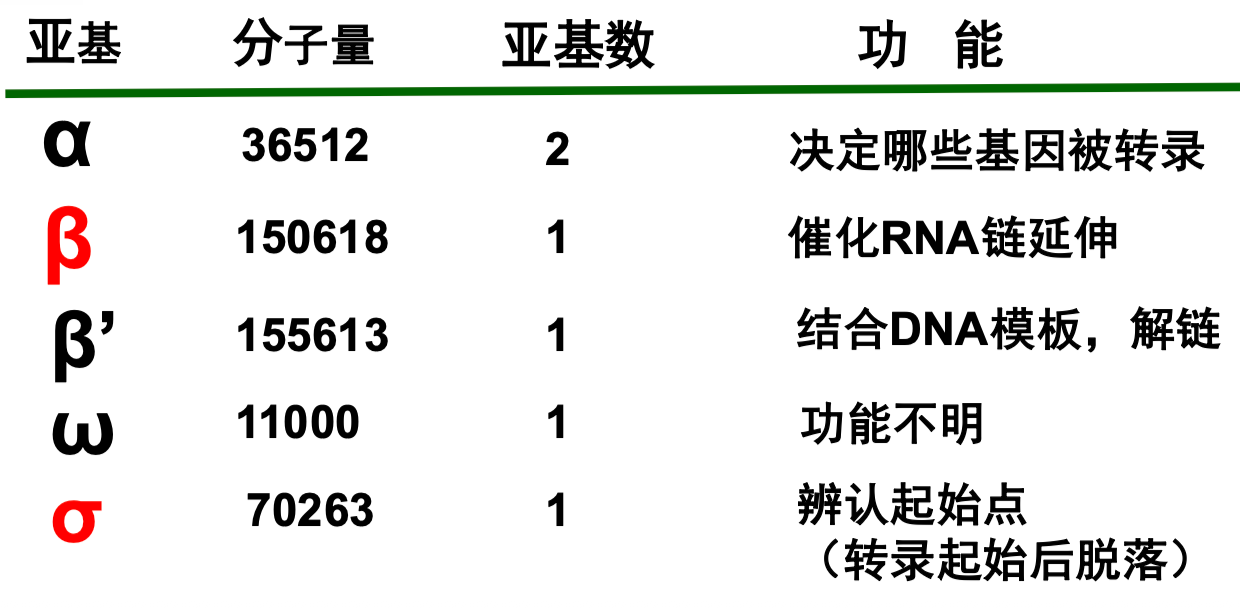
原核RNA聚合酶具有多种功能
- 识别转录起始点
- 促使DNA双链打开17bp
- 催化NTP以3’,5’磷酸二酯键相连,方向5’→3’
- 识别转录终止信号
原核RNA聚合酶作用特点
- 聚合速率慢,30-85 nt/s(DNA合成250-1000nt/s)
- 缺乏3’ →5’外切酶活性,无校对功能,错误率高(10-4 ~ 10-5,DNA合成错误率10-9 ~ 10-10 )
- 活性可被利福霉素抑制(与β亚基结合)(利福霉素抗结核
三、RNA聚合酶结合到DNA的启动子上启动转录
RNA-pol Protection Assay
- 转录起始点 (start site):以+1表示,一般为A或G
- 上游(upstream):基因调控区(启动子(+1上游)、增强子、静息子)
- 下游(downstream):基因转录区(结构基因、终止子)
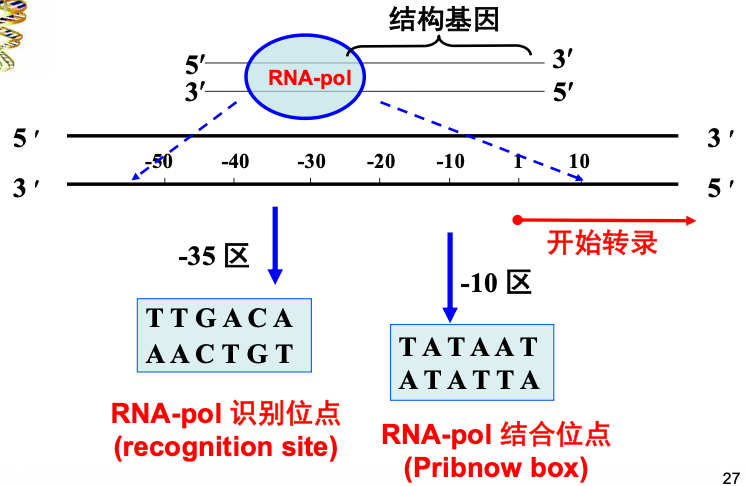
启动子(promoter):
- 位于转录起始点上游的一段核苷酸序列,是RNA聚合酶识别并结合模板DNA的特定部位
- 原核:识别-35区,结合-10区(pribnow box)
- 真核:识别-40~-110区(CAAT box~GC box),结合-25区(TATA box)
原核生物启动子保守序列
第二节 原核生物的转录过程
一、 转录起始需要RNA聚合酶全酶
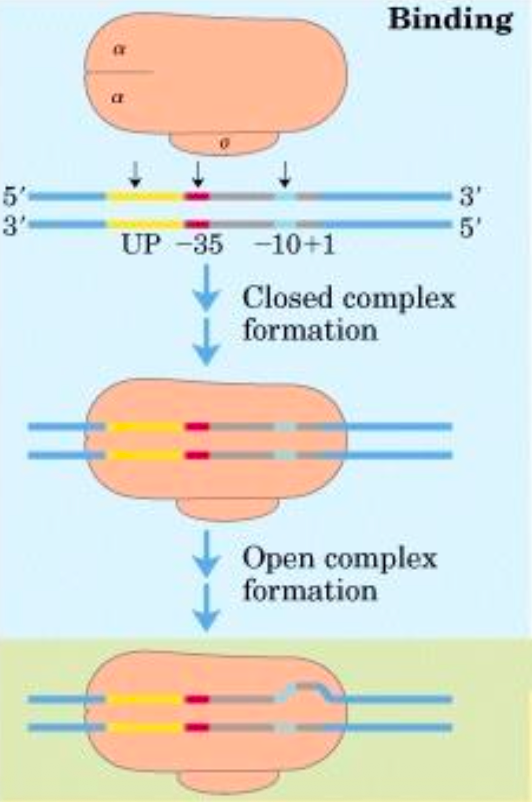
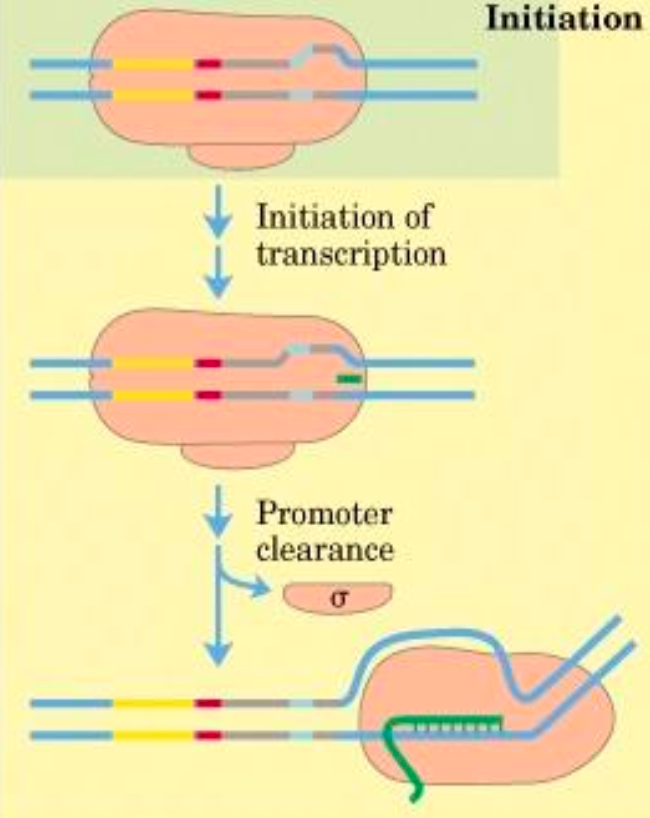
转录起始过程
- RNA聚合酶-σ识别DNA启动子(-35区)
- 全酶与启动子结合(-10区)
- DNA构象改变,启动子-10区处打开双链DNA分子(约17bp)
- 转录开始,形成第一个3’,5’磷酸二酯键(不需引物)
- σ脱落(循环使用),核心酶沿模板向下游移动
二、RNA pol 核心酶独立延长RNA链
- 核心酶沿DNA模板链向下游方向滑动
- NTP以3’,5’-磷酸二酯键逐个相连形成RNA链,方向5’-3’
- RNA链延长,暂时形成DNA•RNA杂交体(约8bp)
- RNA逐步脱离模板链
- 核心酶滑过的部位,DNA链很快恢复双螺旋结构
转录泡 (transcription bubble)
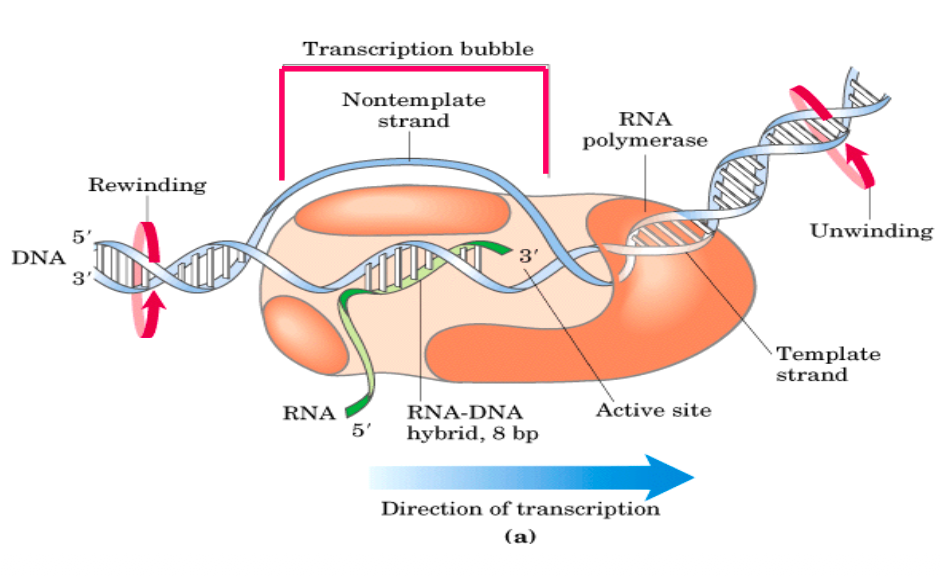
由DNA双链(打开约17bp),RNA聚合酶与新合成的RNA链局部形成的结构(8bp)
三、转录终止( Termination )
- 核心酶遇到DNA模板的终止信号
- 核心酶不能继续滑动
- 核心酶从模板DNA上脱落
- 新合成的RNA链脱落,转录终止
终止信号(stop signal):
- 在基因单位中,具有停止转录作用的部位,
- 包括GC富集区和AT富集区, 也称终止子(terminator)
原核转录终止方式:
- 不依赖ρ因子
- 依赖ρ因子
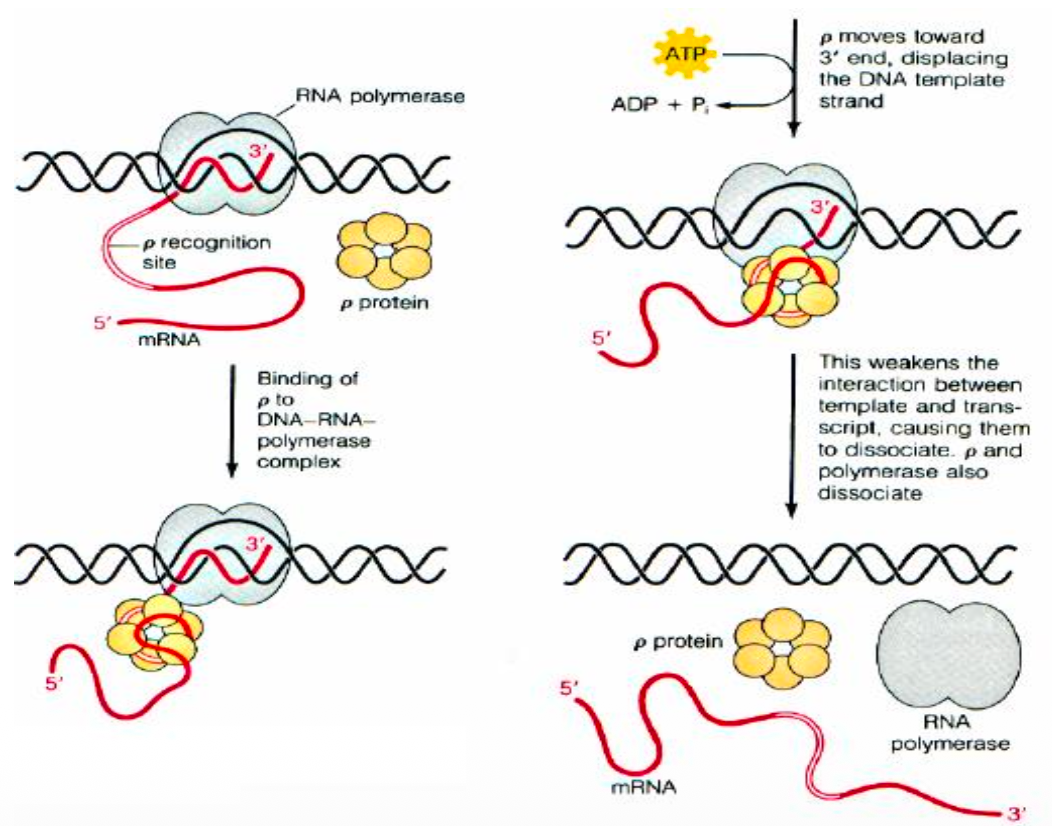
- 依赖ρ因子的转录终止
- ρ因子:6聚体蛋白质
- 辅助识别终止信号
- 诱使RNA聚合酶构象改变
- 具有解螺旋酶活性,释放RNA产物
- ρ因子:6聚体蛋白质
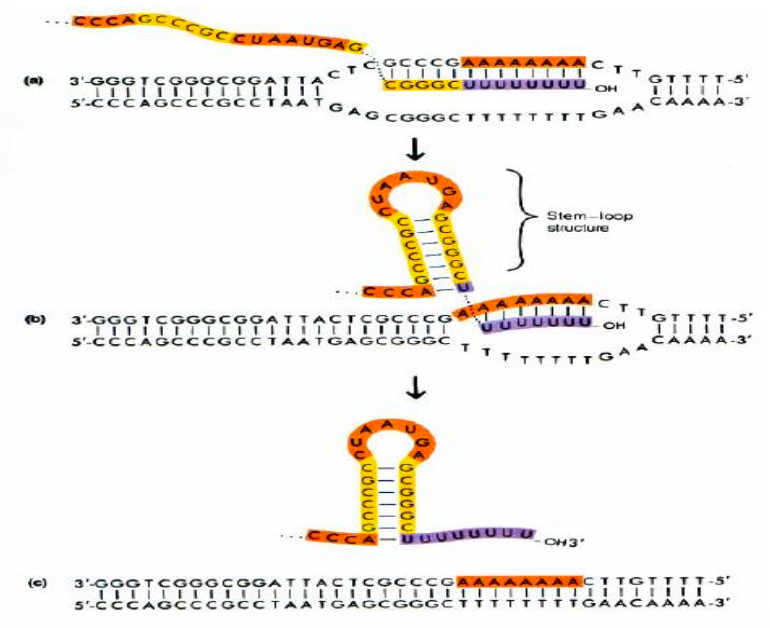
- 不依赖ρ因子的转录终止
- GC富集区和AT富集区——RNA形成发卡结构和多聚U序列,促使转录终止。
第三节 真核生物RNA的生物合成
Roger D. Kornberg,Nobel Prize in Chemistry 2006
一、真核生物有三种DNA依赖的RNA聚合酶
| 种类 | I | II | III | Mt |
|---|---|---|---|---|
| 定位 | 核仁 | 核质 | 核质 | 线粒体 |
| 转录产物 | 5.8S/18S/28S rRNA前体 | hnRNA U1,U2,U4,U5 snRNA前体 | tRNA前体 5S_rRNA前体 U6_snRNA前体 |
线粒体RNA |
| 利福平 | 不敏感 | 不敏感 | 不敏感 | 敏感 |
| 鹅膏蕈碱 | 不敏感 | 极敏感 | 中等敏感 | 不敏感 |
- 真核生物的RNA聚合酶都有两个不同的大亚基和十几个小亚基
- RNA pol II在核内转录生成核不均一RNA(hnRNA),然后加工成mRNA并输送给胞质的蛋白质合成体系
- 12个亚基组成,最大的亚基称为RBP1
- 最大亚基的羧基末端:Tyr-Ser-Pro-Thr-Ser-Pro-Ser重复,羧基末端结构域(carboxyl-terminaldomain, CTD)
二、转录因子在转录起始中起重要作用
(一)转录起始复合物的形成
起始过程比原核生物复杂
- 上游调控序列复杂
- 启动子Promoter
- 增强子Enhancer、静息子Silencer等
- RNA聚合酶不直接与模板结合
- 转录前起始复合物 pre-initiation complex, PIC
- 需多种转录因子参与
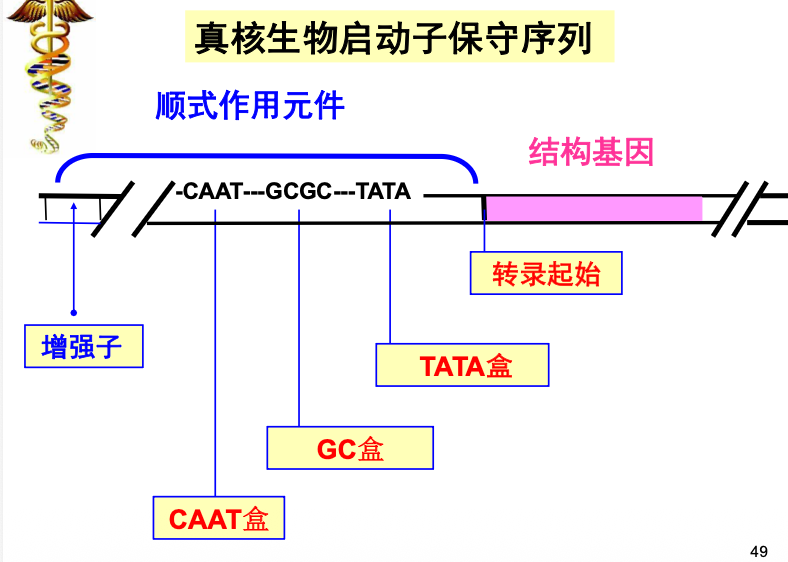
- DNA:顺式作用元件;结合的蛋白质:反式作用因子
- //间隔:数百/数千bp;三维结构
- 真核生物转录起始也需要RNA pol对起始点上游DNA序列进行辨认和结合,生成转录前起始复合体(preinitiation complex, PIC)
- RNA pol不直接识别和结合模板的起始区,而是依靠转录因子识别并结合起始序列
-
不同的RNA pol需要不同的基本转录因子(TF)配合完成转录的起始和延长
- 相对应于RNA pol I、 RNA pol II、RNA pol III,这些TF分别称为TFI、TFII、TFIII。
-
能直接、间接辨认和结合转录上游区段DNA的蛋白质,现已发现数百种,统称为反式作用因子(trans-acting factors)。
- 反式作用因子中,直接或间接结合RNA聚合酶的 ,则称为通用转录因子(general transcription factor)或基本转录因子(basal transcription factor)
TFII D:TATA-binding proting(TBP)、TAFs(TBP associated factors)
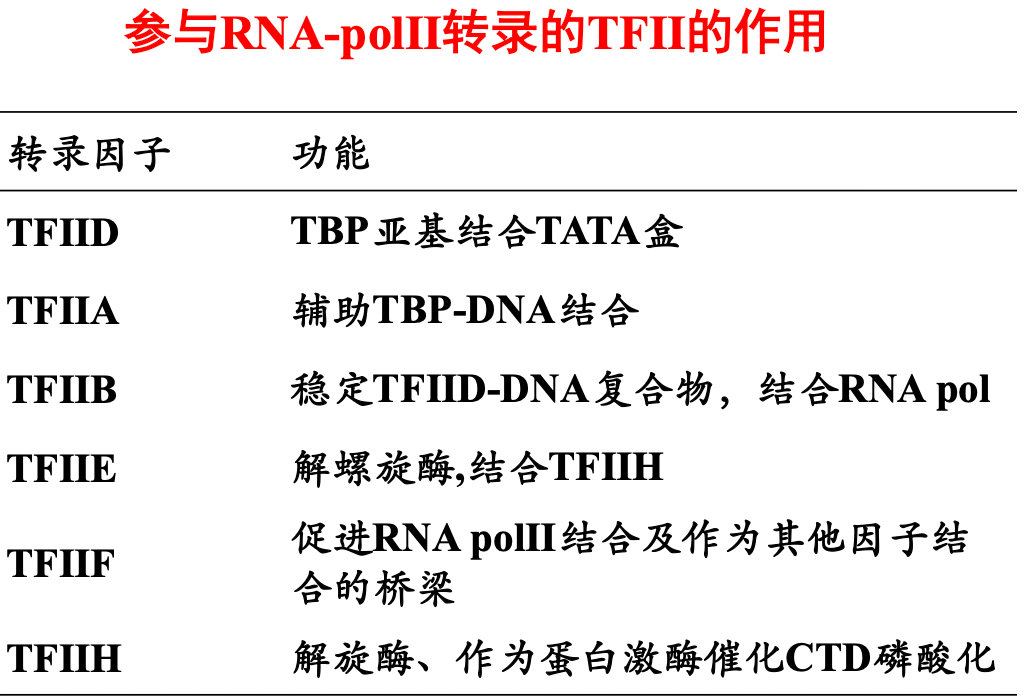
转录前起始复合体的形成步骤
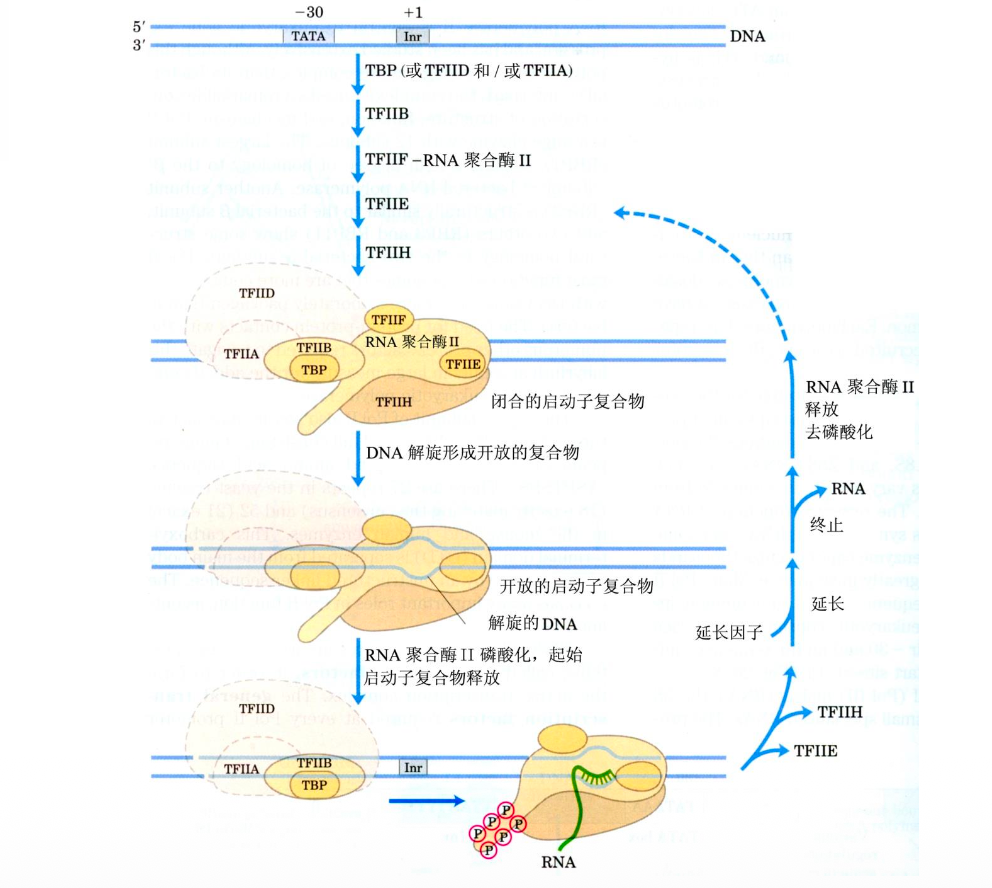
- 由TFIID中的TBP识别TATA盒,并在TAFs的协助下结合到启动子区,然后TFIIB与TBP结合,同时TFIIB也能与DNA结合,TFIIA可以稳定与DNA结合的TFIIB-TBP复合体;
- TFIIB-TBP复合体与RNA pol II-TFIIF复合体结合,此举可降低RNA pol II 与DNA的非特异部位的结合,协助RNA pol II 靶向结合启动子;
- TFIIE和TFIIH加入,形成闭合复合体,装配完成。
真核RNA聚合酶Ⅱ与通用转录因子的作用过程
除了基本转录因子外,真核基因的转录起始还有其他
转录因子的参与,如与启动子上游元件如GC盒、
CAAT盒等顺式作用元件结合的上游因子(upstream
factor),与远隔调控序列如增强子等结合的反式作
用因子,以及在某些特殊生理或病理情况下被诱导产
生的可诱导因子(inducible factor)的参与。
(二)少数几个反式作用因子的搭配启动特定基因的转录
- 为了保证转录的准确性,不同基因需不同转录因子。
- 拼板理论(piecing theory) :少数几个反式作用因子 (主要是可诱导因子和上游因子)之间互相作用,再与基本转录因子、RNA聚合酶搭配而有针对性地结合、转录相应的基因。可诱导因子和上游因子常常通过辅激活因子或中介子与基本转录因子、RNA聚合酶结合,但有时也可直接与基本转录因子、RNA聚合酶结合。
三、 转录延长中没有转录与翻译同步现象
- 真核生物转录延长过程与原核生物大致相似,但因有核膜相隔,没有转录与翻译同步的现象。
- RNA-pol前移处处都遇上核小体。
- 转录延长过程中可以观察到核小体移位和解聚现象
四、真核生物的转录终止和加尾修饰同时进行
- 真核生物的转录终止,是和转录后修饰密切相关的。
- 真核生物mRNA有聚腺苷酸(poly A)尾巴结构,是转录后才加进去的。
- 转录不是在poly A的位置上终止,而是超出数百个乃至上千个核苷酸后才停顿。已发现,在读码框架的下游,常有一组共同序列AATAAA,再下游还有相当多的GT序列。这些序列称为转录终止的修饰点。
- 转录终止修饰点 AATAAA….GTGTGT… (编码链)
第四节 真核生物RNA的加工和降解
Post-transcriptional Modification of Eukaryotic RNA
真核生物RNA的加工和降解是指将转录生成的前体RNA转变为成熟的、有活性的RNA的过程
主要加工方式:
- 剪切(cleavage)和剪接(splicing)
- 末端添加(terminal addition)核苷酸
- 化学修饰(modification)
- RNA编辑(RNA editing)
mRNA生成特点(原核&真核)
- 原核生物:
- 多顺反子mRNA (polycistronic mRNA)
- 没有核膜,转录和翻译同时进行
- 不需复杂加工就表现出生物活性
- 真核生物:
- 单顺反子mRNA (monocistronic mRNA)
- 转录生成的是mRNA前体-hnRNA
- 需要在细胞核加工成成熟的mRNA
(一)真核生物mRNA前体的加工
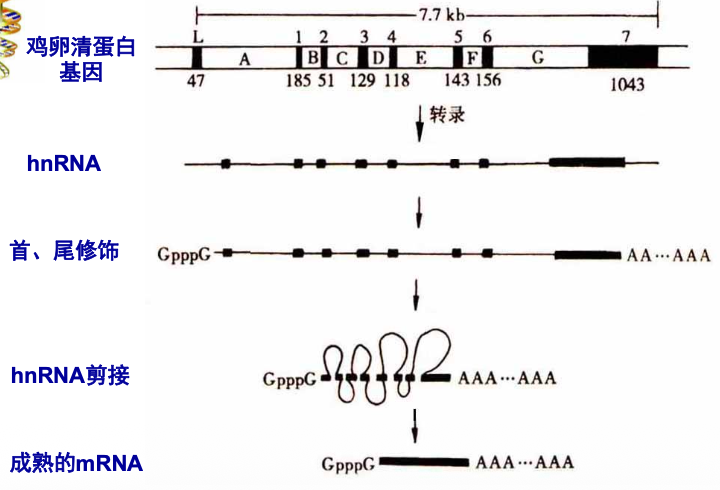
- 5’末端加帽(5’ cap)(7甲基鸟嘌呤)
- 3’末端加尾(3’ polyA tail)
- 剪接去除内含子
- mRNA编辑
鸡卵清蛋白基因及其转录、转录后加工
5’末端帽子的生成:
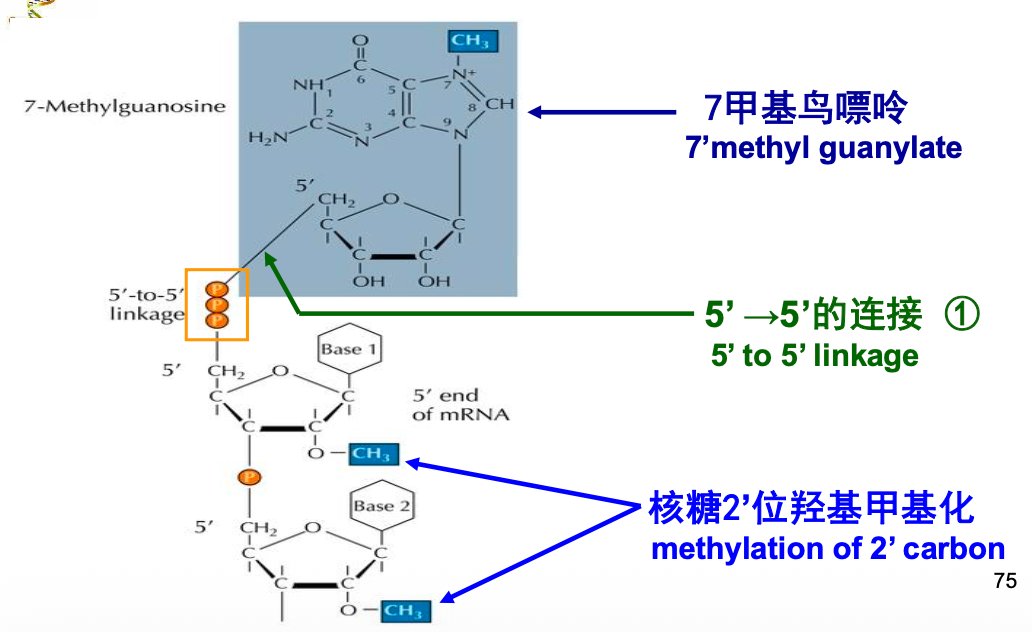
- 7甲基鸟嘌呤 7’methyl guanylate
- 核糖2’位羟基甲基化 methylation of 2’ carbon
- 功能
- 保护新合成的mRNA免被降解
- 参与第一个内含子的剪接
- 协助mRNA转移至胞浆
- 协助mRNA在核糖体的准确定位
- 增加翻译活性
3’末端多聚A“尾”的生成 3’ polyadenylation
RNA+ nATP ——多聚A聚合酶—— RNA(AMP)n + nPPi
功能:
- 增加mRNA的稳定性
- 参与最后一个内含子的剪接
- 加强翻译活性
剪接作用(mRNA splicing)
- 外显子(exon) :在断裂基因及初级转录产物中出现,并表达为成熟RNA的核酸序列。
- 内含子(intron) :隔断基因的线性表达,在剪接过程中被去除的核酸序列。
- 剪切hnRNA中内含子序列,将各外显子序列连接为成熟mRNA的过程。
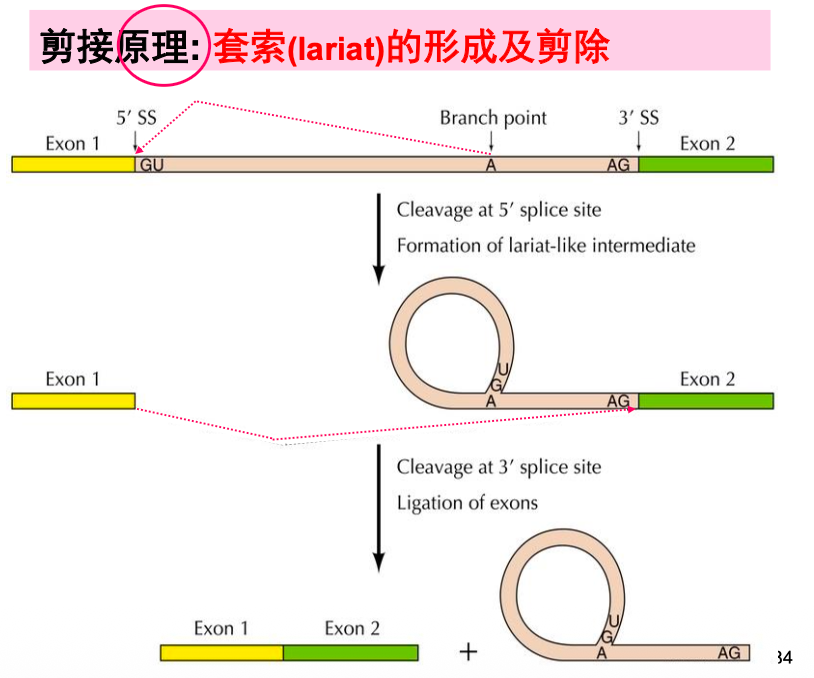
- 剪接部位的结构特点:
- 内含子5’端剪切点序列为:GU
- 内含子3’端剪切点序列为:AG
- 内含子3’端剪切点上游附近A序列分支点
过程:
- 内含子形成套索RNA被剪除
- 剪接首先涉及套索RNA(lariat RNA)的形成,即内含子区段弯曲,使相邻的两个外显子互相靠近而利于剪接。
- 此后,还发现内含子近3′端的嘌呤甲基化,例如3mG是形成套索所必需的。
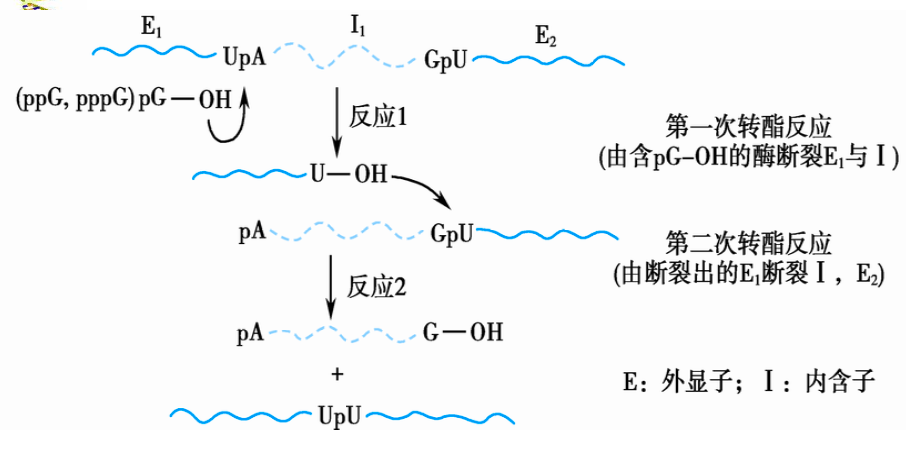
- 内含子在剪接接口处剪除
- 大多数内含子都以GU为5端的起始,而其末端则为AG-OH-3。
- 5GU……AG-OH-3 称为剪接接口(splicing junction)或边界序列。
- 剪接后,GU或AG不一定被剪除。
- 剪接过程需两次转酯反应
- 剪接体是内含子剪接场所
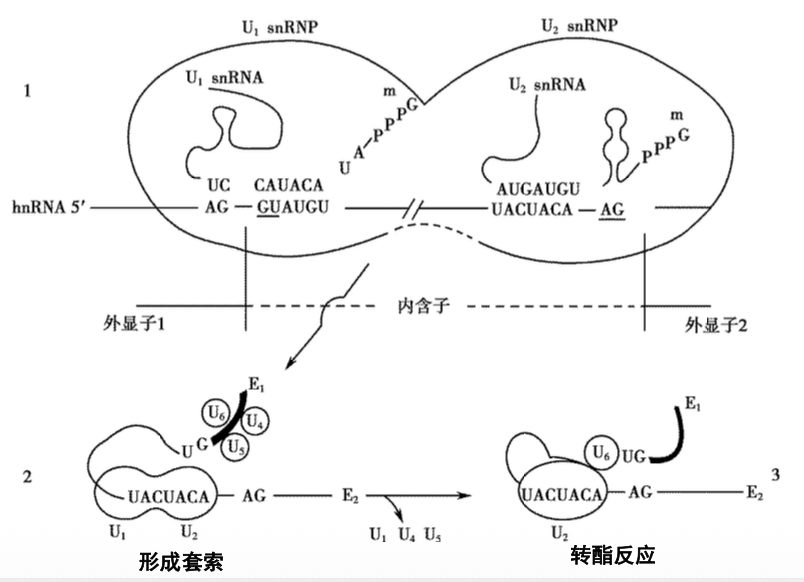
剪接体参与mRNA前体的剪接
- 剪接体(spliceosome): UsnRNP与mRNA前体结合形成的复合物
- UsnRNP(Uridine-rich small nuclearribonucleoprotein ):snRNA+核蛋白
- U1 U2 U4 U5 U6
- 前体mRNA分子有剪切和剪接两种模式
- 前体mRNA分子的加工除上述剪接外,还有一种剪切(cleavage)模式。
- 剪切指的是剪去某些内含子后,在上游的外显子3-端直接进行多聚腺苷酸化,不进行相邻外显子之间的连接反应。
- 剪接是指剪切后又将相邻的外显子片段连接起来
- 前体mRNA分子可发生可变剪接
- 许多前体mRNA分子经过加工只产生一种成熟的mRNA,翻译成相应的一种多肽;有些则可剪切或(和)剪接加工成结构有所不同的mRNA,这一现象称为可变剪接(alternative splicing),又称选择性剪接。
- 可变剪接(Alternate splicing of mRNA):同一个初级转录本,在不同组织中由于剪接作用的差异,可产生不同的成熟mRNA,导致翻译生成不同的蛋白质产物。
RNA编辑(RNA editing)
- 遗传信息在RNA水平发生改变,由一个基因产生不止一种蛋白质的加工方式。
- 核苷酸插入、删除或替换
二、tRNA前体的加工
Processing of tRNAs Precursor
剪接和剪切
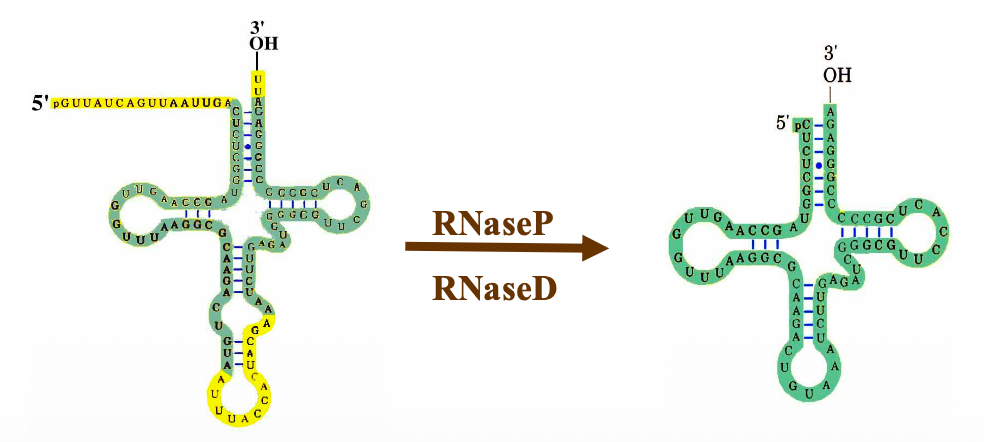
- 剪切(cleavage)
- RNase P切除5’端多余的核苷酸
- RNase D切除3’端多余的核苷酸
- 剪接(splicing): 去除内含子序列
3’末端添加-CCA
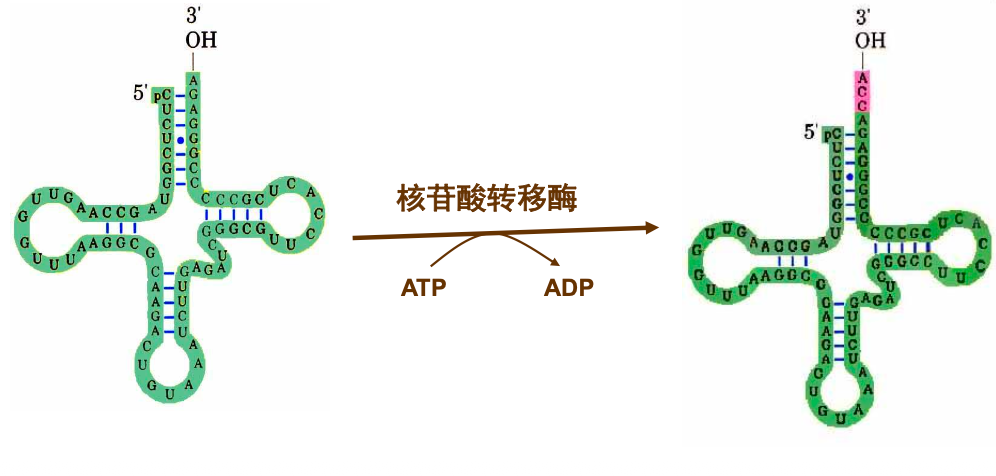
核苷酸转移酶、ATP
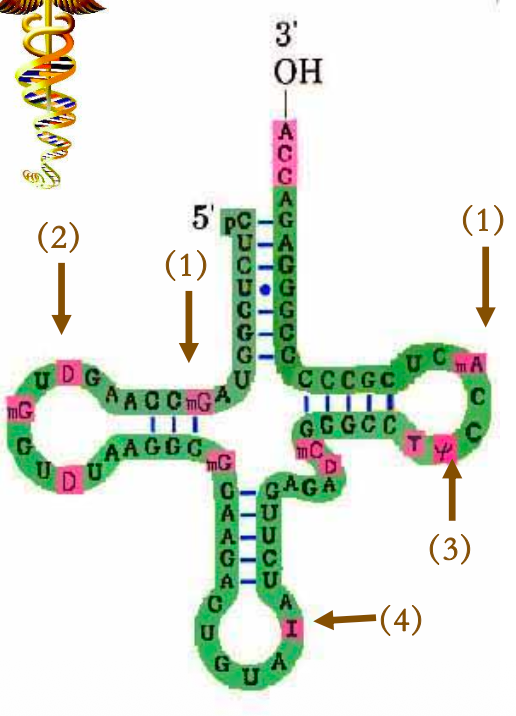
碱基修饰
- 甲基化
- 如:A → A^m
- G → G^m
- 还原反应
- 如:U → DHU
- 核苷内的转位反应
- 如:U → ψ
- 脱氨反应
- 如:A → I
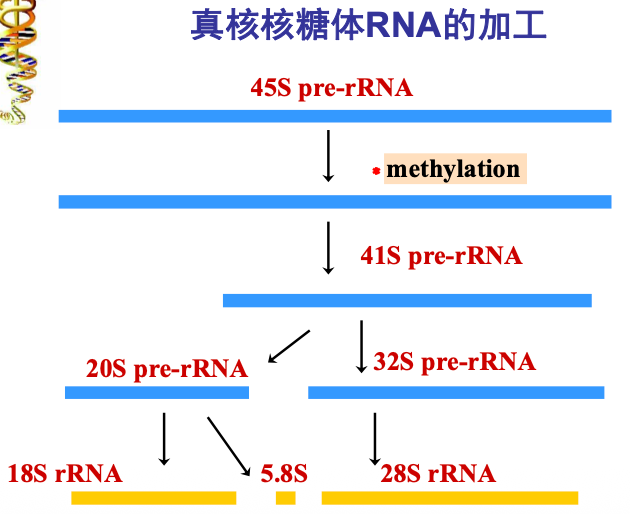
三、rRNA前体的加工
Processing of rRNAs Precursor
- 剪接
- 甲基化修饰
四、RNA催化一些真核和原核基因内含子的自剪接
- 核酶 ribozyme:具有催化活性的RNA
- 核糖核酸酶 RNase:水解核糖核酸链,化学本质是蛋白质
核酶类型
- 剪切型
- 催化自身RNA或异体RNA分子剪去一段多核苷酸片段,功能类似于内切核酸酶
- 剪接型
- 切去自身RNA内部一段多核苷酸片段,再将剩余的两个片段连接,功能类似于内切核酸酶与连接酶的联合作用
- 其他类型
五、RNA在细胞内的降解有多种途径
(一)依赖于脱腺苷酸化的mRNA降解
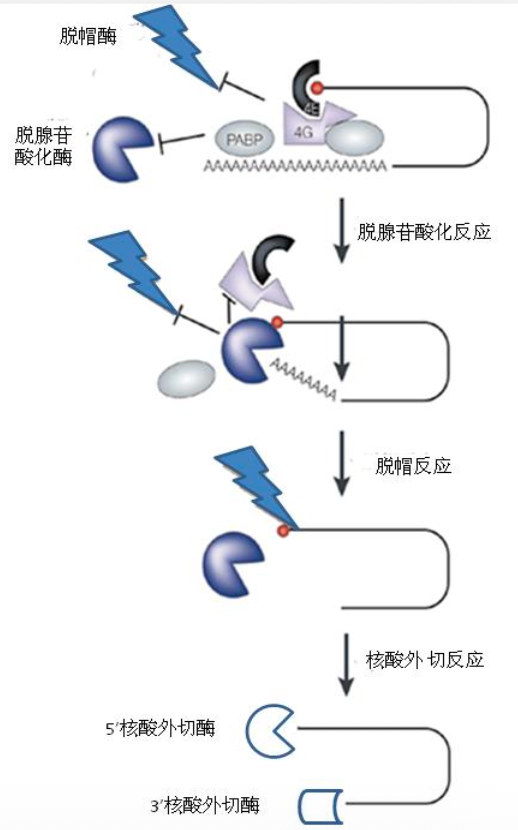
- 脱帽酶、脱腺苷酸化酶
(二)无义介导的mRNA降解是重要的真核细胞mRNA质量监控机制
- 真核细胞mRNA的异常剪接可能会产生无义(nonsense)的终止密码子,由此产生的mRNA降解称为无义介导的mRNA降解(nonsense-mediated mRNA decay,NMD),是广泛存在的mRNA质量监控的重要机制。
- 那些含有提前终止密码子(premature translational-termination codon, PTC)的mRNA会被选择性清除。
final
multiple forms for review in PDF