细胞表面与细胞外基质
文集 医学分子细胞遗传基础 共 25 篇
目录
课程来源:北京大学医学部 · 分子细胞遗传基础
细胞表面(cell surface)
- 细胞与内、外环境相接触的表面
- 细胞与外界传递和交换物质、能量和信息的场所
- 维持细胞内环境稳定的保护屏障
- 参与细胞运动、生长、分化等多种生理、病理过程
- 由外向内包含三层结构
- 细胞外被(cell coat)
- 质膜(plasma membrane)
- 细胞皮质(cell cortex)
细胞外被(cell coat)
主要为糖萼(glycocalyx):质膜外表面的覆盖物,富含糖类物质(钌红染色后电镜下可观察到小肠上皮细胞微绒毛及糖萼)。
主要成分:糖缀合物(glycoconjugates) —— 糖类与非糖分子通过糖苷键共价结合而成,包括:
- 糖脂
- 糖蛋白
- 蛋白聚糖
- 糖RNA(glycoRNA)(Carolyn R. Bertozzi, DOI: 10.1016/j.cell.2021.04.023)
特点与功能:
- 特点:糖链变化多样;富含带负电荷的糖基(唾液酸、硫酸化糖基、糖醛酸等)
- 功能:
- 保护与屏障作用
- 使细胞免受机械和化学损伤
- 阻止蛋白-蛋白间直接相互作用,与其他细胞保持一定距离
- 重塑微环境:糖链富含负电荷,吸引大量水分子
- 识别与黏附
- 细胞识别:与微环境间的相互作用;糖链是识别的分子基础;是发生黏附、建立连接的前提
- 凝集素(lectin)特异性识别糖链:介导白细胞在血管内皮细胞的游走及穿行
- 保护与屏障作用
选择素(Selectin)
选择素家族有三个成员,分别来自:
- L-选择素(CD62L)——白细胞(Leukocytes)
- P-选择素(CD62P)——血小板(Platelets)
- E-选择素(CD62E)——内皮细胞(Endothelium)
结构类似,胞外区有 3 个结构域(功能区):
- N 末端钙离子依赖性凝集素(Lectin)结构域 CRD,结合糖链
- 表皮生长因子(EGF)样结构域
- 补体结合蛋白重复序列(CR),各成员重复次数不同:P-选择素最多 9 个,E-选择素 6 个,L-选择素仅 2 个
血细胞渗出(diapedesis):血细胞通过未破损血管的内皮间隙向血管外迁移的过程,通过细胞旁通路实现。炎症因子刺激下,白细胞通过选择素介导的细胞黏合,沿内皮间隙滚动至三细胞孔角(tricellular corner)处,通过变形运动挤进孔角;血管内皮细胞受刺激后,与紧密连接和粘合带相连的微丝收缩,三细胞孔角扩大,促使白细胞完成渗出。
Siglec 与免疫抑制
Siglec:唾液酸结合免疫球蛋白样凝集素(sialic acid-binding immunoglobulin-like lectin)。Sia(唾液酸)-Siglec 相互作用可抑制免疫应答(Nature Chemical Biology, 2020, 16: 1376-1384)。
细胞皮质(cell cortex)
与质膜胞质侧紧密结合的一层凝胶状物质,富含膜外周蛋白和组装成纤维网状的蛋白,可调控细胞表面重塑(凸起、凹陷、融合等)。
细胞皮质常募集(recruit):
- 构成皮质细胞骨架的蛋白(Actin)
- 参与信号转导的蛋白(受体等)
- mRNA 等
皮质细胞骨架(cortical cytoskeleton):由细胞皮质内的肌动蛋白、微管蛋白等成分组装成的纤维束与纤维网。
- 可加固质膜,诱导细胞表面重塑
- 调控细胞的黏附、连接、极性、迁移、分裂和死亡等过程
红细胞的皮质骨架(膜骨架)
红细胞是研究细胞膜骨架(细胞皮质)的良好模型。
- 血影(ghost):成熟红细胞溶血后剩下的一层细胞膜外壳
- 红细胞呈双凹圆盘状;膜骨架整体呈现以六边形为主的多边形二维网格结构
主要成分:
| 成分 | 位置/作用 |
|---|---|
| 血影蛋白(spectrin) | 由 α 链和 β 链组成二聚体,两个二聚体头-头相连形成四聚体 |
| 锚蛋白(ankyrin) | 将 spectrin 连接到带 3 蛋白 |
| 带 4.1 蛋白(band 4.1) | 连接 spectrin 与 F-actin |
| F-actin(肌动蛋白) | 骨架纤维 |
| 带 3 蛋白(band 3) | 质膜内侧,锚蛋白结合位点 |
| 血型糖蛋白(glycophorin) | 质膜外侧 |
| 添加素(adducin)、原模素(tropomodulin)、原肌球蛋白(tropomyosin) | 调节骨架组装 |
其他相关分子:EF 手型钙离子结合结构域(spectrin)、糖酵解酶复合体(GEC)、Glut1(葡萄糖转运体 1)、CD47(BLOOD, 2016, 127(2): 188)。
细胞表面的特化结构
- 以微丝为支架的结构:微绒毛等
- 以微管为支架的结构:纤毛、精子的鞭毛(flagellum,含线粒体 Mi 与轴丝 Ax)
- 其他:陷窝、网格包被小窝
细胞外基质(extracellular matrix, ECM)概述
跟腱(Achilles' Tendon)损伤——"阿喀琉斯之踵"(Achilles' Heel)
- ECM 的基本概念:存在于细胞外间隙中,由蛋白质和糖类组装成的结构精细、复杂的不溶性大分子纤维网络和凝胶
- 主要组成成分:胶原、弹性蛋白、非胶原糖蛋白、糖胺聚糖(氨基聚糖)与蛋白聚糖
ECM 的存在形式:
- 骨、牙:钙化基质,坚硬如岩石
- 肌腱、韧带:坚韧如绳索,适于承受张力
- 角膜:透明层,软而透明
ECM 的功能:
- 为组织的构建提供支撑框架
- 调节细胞的多种生命活动:增殖、分化、迁移、存活与死亡
第一节 ECM 的主要成分
一、结构蛋白
(一)胶原(collagen)
- 一种糖蛋白,不溶性的纤维蛋白
- 动物体内含量最丰富、分布最广泛的蛋白质,占人体蛋白质总量的 25% 以上
- 细胞外基质中的骨架结构
不同组织中胶原的含量(克/100 克干重):
| 组织 | 含量 | 组织 | 含量 |
|---|---|---|---|
| 脱盐骨 | 88.0 | 韧带 | 17.0 |
| 跟腱 | 86.0 | 主动脉 | 12~24 |
| 皮肤 | 71.9 | 肺 | 10 |
| 角膜 | 68.1 | 肝 | 4 |
| 软骨 | 46~63 | — | — |
1. 胶原分子的基本结构
- 三条肽链形成的三股超螺旋结构,一般长 300 nm,直径 1.5 nm
- 每条肽链称 α 链,由 (Gly-X-Y)n 重复序列构成
- Gly 含量约占胶原氨基酸总量的 1/3
- X、Y 可为任意氨基酸;常见 X 为 Pro(脯氨酸),Y 为 Hypro(羟脯氨酸)或 Hylys(羟赖氨酸)
- 羟基可形成链间氢键,有助于三股超螺旋结构稳固
- α 多肽链自身卷曲为左手螺旋结构
- 体内含量最高的 Ⅰ 型胶原 α1 链,其三肽(G-X-Y)n 重复次数 n = 338 次
- 目前发现编码 α 链的基因 42 种;α 链相同形成同源三聚体,不同则形成异源三聚体
| 类型 | 分子组成 |
|---|---|
| Ⅰ | [α1(Ⅰ)]₂[α2(Ⅰ)] |
| Ⅱ | [α1(Ⅱ)]₃ |
| Ⅲ | [α1(Ⅲ)]₃ |
2. 胶原的分类
按是否形成原纤维:
- 原纤维性胶原:形成胶原原纤维,可进一步聚集成粗大的胶原纤维
- 包括 Ⅰ、Ⅱ、Ⅲ、Ⅴ 和 Ⅺ 型胶原
- 在组织中含量最丰富,是细胞间质的主要成分
- 主要分布于皮肤、骨、肌腱、韧带、软骨和血管等
- 为结缔组织提供抗张强度
- 成网胶原:Gly-X-Y 重复序列被非重复序列间隔,形成散在球状结构区域,三股螺旋中断和折转形成网状结构
- 包括 Ⅳ、Ⅷ、Ⅹ 型胶原
- 是基膜大分子网络的主要组成成分
按形态分类:
| 类别 | 相应胶原类型 |
|---|---|
| 纤维状(有横纹) | Ⅰ、Ⅱ、Ⅲ、Ⅴ、Ⅺ |
| FACITs* | Ⅸ、Ⅻ、ⅩⅣ |
| 基膜胶原(三维网状结构) | Ⅳ、Ⅷ、Ⅹ |
| 形成片层的胶原 | Ⅵ、Ⅷ、Ⅹ |
| 形成锚定原纤维的胶原 | Ⅶ |
| 跨膜胶原 | ⅩⅦ |
| 其他 | ⅩⅤ、ⅩⅢ |
*FACITs:Fibril Associated Collagen with Interrupted Triple Helix,具有间断三股螺旋并与原纤维相关的胶原。
3. 胶原的生成过程
产生胶原的细胞:以间质型细胞为主,如成纤维细胞、成骨细胞及成软骨细胞等。
以 Ⅰ 型胶原为例([α1(Ⅰ)]₂[α2(Ⅰ)],由 COL1A1 和 COL1A2 基因编码),分细胞内、外两阶段:
细胞内阶段(转录、翻译、前 α 链修饰及修饰后聚合):
- mRNA 在 RER 翻译成前 α 链(pro-α chain):包括信号肽、N 端前肽、C 端前肽和重复 Gly-X-Y 序列
- ER 中修饰——羟化:Pro 和 Lys 残基羟化,分别由脯氨酰羟化酶、赖氨酰羟化酶催化;维生素 C 是羟化酶的辅助因子
- ER 中修饰——糖基化:羟赖氨酸的糖基化;前肽部分 Asn 残基糖基化;糖链很短;糖基化程度可调控原胶原纤维的直径
- 前 α 链的 C 端前肽借二硫键形成链间交联,三条 α 链"对齐"排列,从 C→N 端聚合形成三股螺旋
- 带前肽的三股螺旋胶原分子称前胶原(procollagen),以囊泡形式分泌到细胞外
细胞外阶段:
- 前胶原在特异性蛋白水解酶(前胶原氨肽酶、前胶原羧肽酶)作用下切去 N 端、C 端前肽,形成不溶性的原胶原(tropocollagen)
- 原胶原是胶原纤维的基本结构单位:三条 α 链盘绕成的三股螺旋,直径约 1.5 nm,疏水性极强、不溶
- 原胶原在细胞外组装成胶原原纤维(collagen fibril):分子呈 1/4 交替有序排列,前后首尾相隔,侧向共价交联,形成明暗相间、直径 10~300 nm、长至数微米、有周期性横纹的胶原原纤维
- 胶原原纤维共价交联,形成不溶性的巨大胶原纤维(collagen fiber)
层次链:三股 α 肽链 → 原胶原 → 胶原原纤维(10~300 nm)→ 胶原纤维(0.5~3 μm)
4. 胶原蛋白的功能
- 提供牵张强度(tensile strength):组织破裂时所需单位面积的张力
- 与胶原含量、胶原纤维的结构和纤维束直径有关,交联键越多抗张力强度越大
- Ⅰ 型胶原纤维的抗张力强度超过钢材
- 跟腱是体内最强的腱,交联度最高
- 构成 ECM 的骨架,维持组织的结构形态
- 胶原在 ECM 中刚性及抗张力度最大
- 在 ECM 中含量最高,几乎参与所有 ECM 的构建
- 与其他成分结合形成结构与功能的复合体
5. 胶原蛋白异常与疾病(胶原病,collagen disease)
| 疾病 | 机制与表现 |
|---|---|
| 坏血病(scorbutus) | 维生素 C 缺乏 → 脯/赖氨酰羟化酶活性降低 → 前胶原羟化不足 → 无法形成稳定三股螺旋,在细胞内被降解 → 血管、肌腱、皮肤脆性增加,齿龈肿胀、出血,皮下瘀点,关节及肌肉疼痛 |
| 成骨不全(OI) | 脆骨病/"瓷娃娃",骨胶原病;编码 Ⅰ 型胶原 α1、α2 链的 COL1A1、COL1A2 突变或缺失;常染色体显性遗传;易骨折、骨骼畸形、巩膜颜色异常(蓝/灰)、耳聋等 |
| 脏器纤维化 | 胶原合成与降解动态平衡紊乱、比例与类型异常:心脏纤维化 Ⅰ/Ⅲ 比例增加;肝纤维化 Ⅰ、Ⅲ、Ⅳ、Ⅴ、Ⅵ 型明显增加;肺纤维化 Ⅳ、Ⅱ 型异常;肾纤维化 Ⅰ、Ⅲ 型表达明显增强 |
胶原小结:
- 含量最丰富的细胞外基质糖蛋白
- 由 3 条 α 链盘绕成的三股超螺旋结构
- α 链具有 Gly-X-Y 三肽重复序列,通常 X 是脯氨酸,Y 是羟脯氨酸或羟赖氨酸
- 是构成结缔组织和基膜的主要大分子骨架
- 对维持组织器官的形态和受力强度具有重要作用
(二)弹性蛋白(elastin)
- 赋予组织弹性的蛋白质
- 高度疏水、非糖基化的蛋白质
- 由成纤维细胞、大动脉平滑肌细胞和软骨细胞等产生
- 主要存在于伸展性较大的组织中
- 韧带中含量最高,约占 80%
- 主动脉 30%~50%
- 肺 10%~25%
- 皮肤 2%~5%
二、非胶原糖蛋白
- 由多个结构域构成的多功能大分子
- 既可与细胞表面受体结合,又可与 ECM 中的成分结合
- 现已发现数十种,主要介绍纤连蛋白和层粘连蛋白
- 影响细胞的存活、形状、粘着、铺展、迁移、增殖和分化等
1. 纤连蛋白(fibronectin, FN)
- 大分子糖蛋白,含糖量 4.5%~9.5%
- 分布广泛,存在形式多样:
- 可溶性 FN 二聚体:血液和体液中
- 细胞表面 FN:附着在细胞表面的二聚体或寡聚体
- 基质 FN:多聚体,包括结缔组织及某些基膜中
- 编码基因只有 1 种,即 FN1;不同细胞中 FN1 转录产物因可变剪接不同而翻译成 20 多种 FN 多肽同形物
分子结构:
- 由两个相似的亚单位通过近羧基端的两个二硫键交联形成"V"字形二聚体
- 具有多个功能域,可与肝素、胶原以及细胞表面受体结合,功能多样
关键序列与功能:
- RGD(精氨酸-甘氨酸-天门冬氨酸):介导 FN 与细胞表面结合的关键序列
- FN 通过 RGD 基序与细胞表面的受体 整联蛋白(Integrin)结合
- 功能:介导细胞粘附、铺展和迁移运动
- FN 突变的小鼠在胚胎早期死亡;内皮细胞与周围 ECM 间相互作用有缺陷,血管形成发生障碍
2. 层粘连蛋白(laminin, LN)
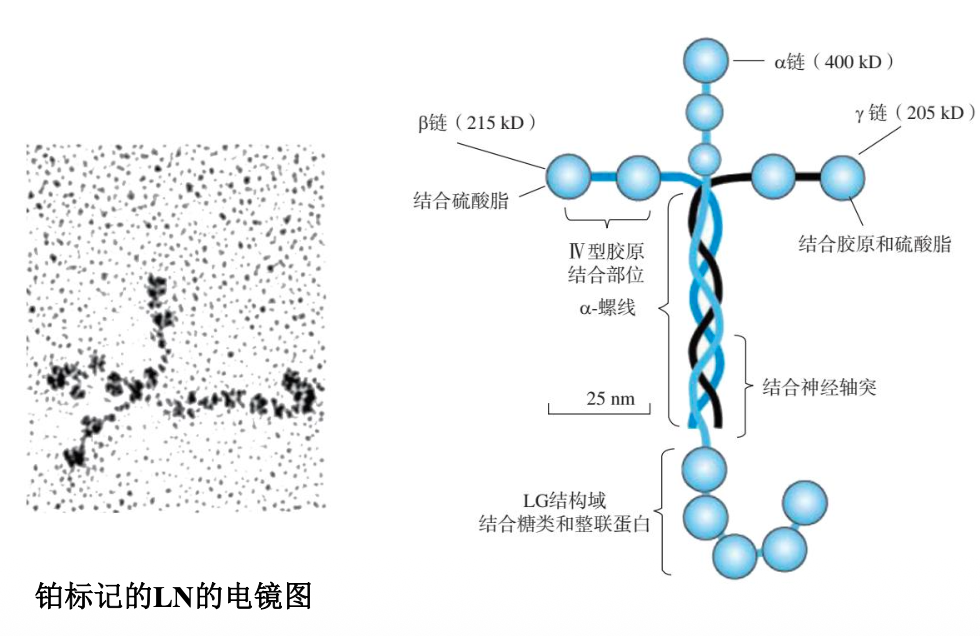
- 一种高分子量糖蛋白,胚胎发育中最早出现的 ECM 成分
- 由一条重链和两条轻链组装成不对称的十字形
- 三条短臂分别由 α、β 及 γ 链的 N 端序列形成
- 长臂为三条多肽链借链间二硫键构成三股超螺旋结构
- α 链的 C 端形成大的球形(LG)区域
- 形成多功能结构域:
- 具有 Ⅳ 型胶原、硫酸乙酰肝素和神经节苷脂等的结合部位
- α 链含有 RGD 序列,与细胞膜上的 Integrin 受体结合
- β 链短臂杆区有 YIGSR 及 PDSGR 五肽基序,可分别与不同的细胞结合
- 对基膜的组装起关键作用
三、糖胺聚糖与蛋白聚糖
1. 糖胺聚糖(glycosaminoglycan, GAG)
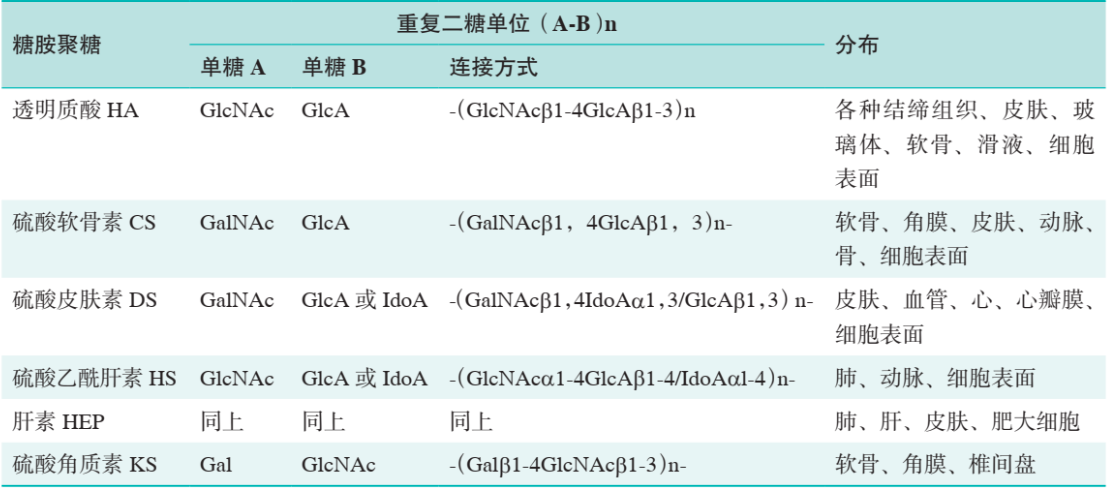
- 由重复的二糖单位构成的直链多糖
- 二糖单位由氨基己糖和糖醛酸组成
- 氨基己糖多为 N-乙酰氨基葡萄糖(N-GlcNAc)或 N-乙酰氨基半乳糖(N-GalNAc)
- 糖醛酸为葡萄糖醛酸或艾杜糖醛酸
- 6 类:透明质酸、硫酸软骨素、硫酸皮肤素、硫酸乙酰肝素、肝素、硫酸角质素
- 根据二糖单位的类型、连接方式、硫酸化修饰的数量及位置分类
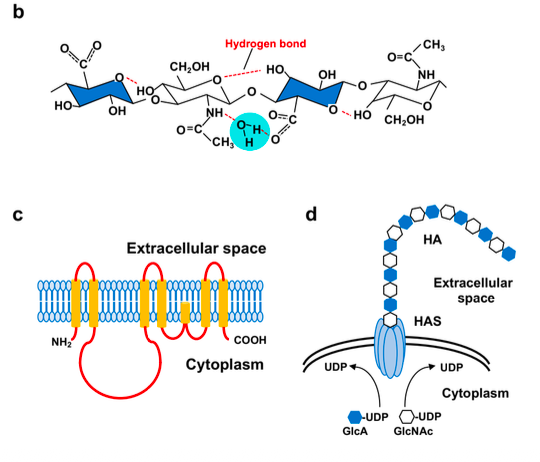
- 透明质酸(HA)的合成:
- HA 合成酶位于细胞膜,有 3 个成员(HAS1、HAS2、HAS3),
- 转移 UDP-GlcNAc 和 UDP-GlcA 底物(Biomolecules 2020, 10, 1525)。
2. 蛋白聚糖(proteoglycan, PG)
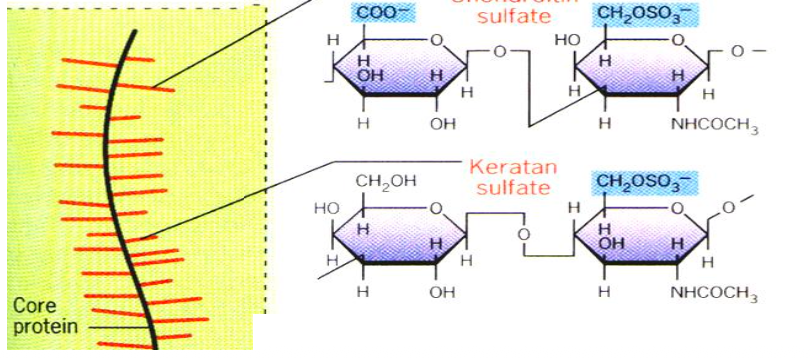
- GAG 与核心蛋白质(core protein)的丝氨酸残基通过共价键结合而成的大分子
- 既能以膜蛋白形式存在于质膜,也可在细胞外构成 ECM 的主要组分
- 除透明质酸外,所有的 GAG 都形成 PG
- 蛋白聚糖单体:一条核心蛋白质与一至数百条不同的糖胺聚糖共价结合;糖基化修饰主要在 Golgi 进行(起始糖基为木糖 Xylose)
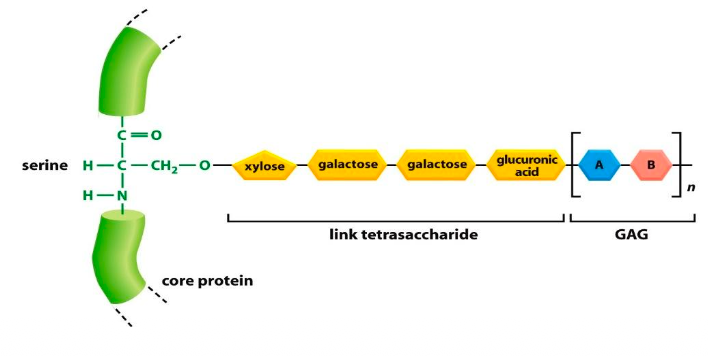
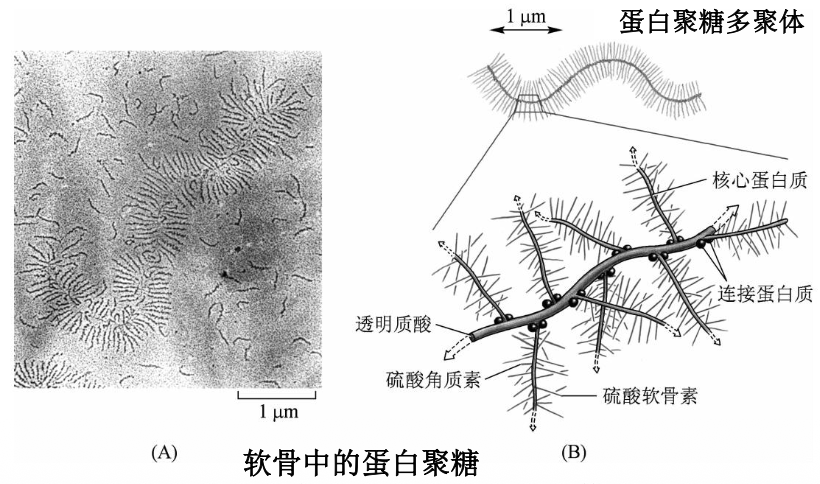
- 蛋白聚糖多聚体:一条核心蛋白质与一至数百条不同的糖胺聚糖共价结合而成;
- 若干个蛋白聚糖单体借连接蛋白以非共价键与透明质酸结合形成(如软骨中的蛋白聚糖)
蛋白聚糖的种类: 人体有 38 种,其中 7 种独立命名(如 CD44),另外 31 种分为 5 组:
| 分组 | 特点 |
|---|---|
| 黏结蛋白聚糖(syndecans) | 单次跨膜蛋白,携带 HS、CS 或 DS,是多种膜受体的辅受体,可募集多种细胞因子 |
| 磷脂酰肌醇蛋白聚糖(glypicans) | 含 GPI 锚,为膜蛋白聚糖,主要携带 HS |
| 小富亮氨酸重复蛋白聚糖(SLRPs) | 位于 ECM,可结合胶原,并与多种细胞表面受体结合 |
| 透凝蛋白聚糖(hyalectans) | 结合 HA 的凝聚素,位于 ECM 和细胞表面 |
| 胶原蛋白聚糖(collagen PG) | 由 Ⅸ、Ⅻ 等型胶原与 CS/DS 或 HS 共价结合而成 |
3. 特殊的跨膜蛋白聚糖 CD44
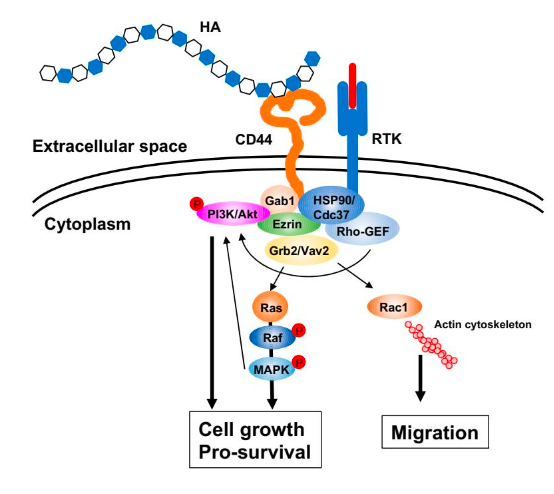
- CD44 是透明质酸(HA)的受体
- HA 的其他受体:TLR4、LYVE-1(淋巴管内皮受体 1)、RHAMM(透明质酸介导运动受体)、ICAM、HARE(透明质酸内吞受体)
- CD44和其变体的功能
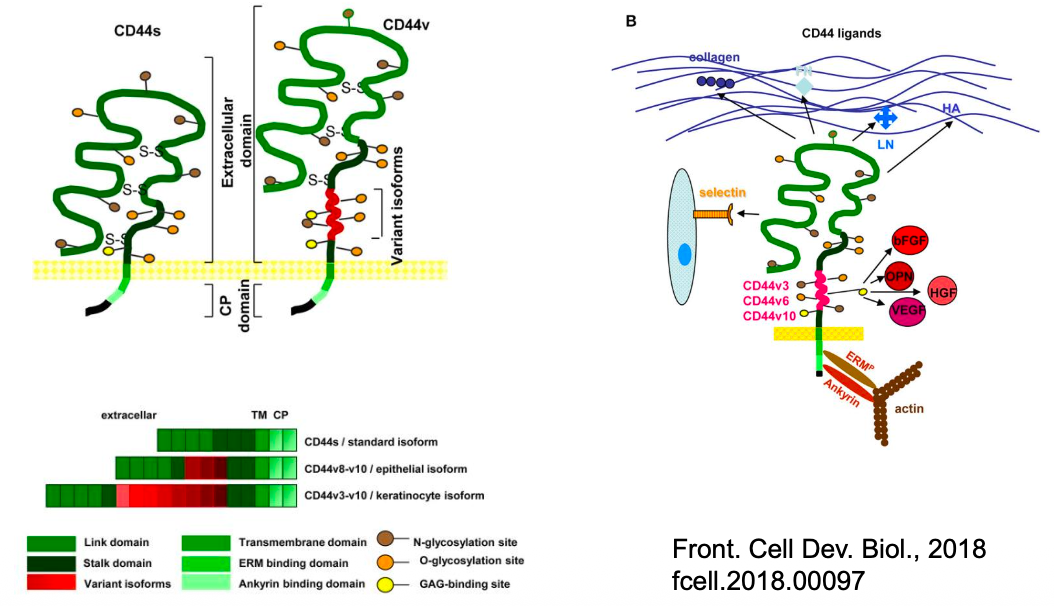
- CD44 参与形态发生、干细胞增殖与分化、胚胎细胞与血细胞迁移等多种过程
- CD44 及其变体在癌细胞高表达;肿瘤微环境(富含 HGF 等生长因子)促进 CD44 的转录和翻译后修饰
- CD44 及其变体的糖链明显区别于正常细胞
- CD44 及其变体是肿瘤干细胞标志物之一
4. 生物学特性及功能
- 占据较大的空间结构:多位硫酸化的硫酸根(-SO₄²⁻)及糖醛酸的羧基(-COO⁻)在生理 pH 下均解离,带大量负电荷,蛋白聚糖单体结构伸展,呈试管刷样结构
- 高度亲水:大量负电荷吸引 Na⁺ 云集,摄入大量水分
- 提供凝胶样环境,缓冲和抗压:外界压力下体积缩小、负电荷相互靠近,同种电荷排斥产生膨胀压抵抗压缩;压力去除后反弹,在弹性蛋白协同下恢复组织原有体积
- 提供结构位点,与 ECM、细胞表面以及生长因子(如 FGF)等结合(syndecan/HS)
第二节 细胞对 ECM 的影响
一、细胞合成 ECM
| ECM 类型 | 合成细胞 |
|---|---|
| 原纤维胶原 | 间质细胞,主要为成纤维细胞 |
| 基膜(含 Ⅳ 型胶原) | 上皮细胞和内皮细胞 |
| 骨组织 | 成骨细胞(osteoblast) |
| 软骨组织 | 成软骨细胞(chondroblast) |
共性:含有信号肽的蛋白质在粗面内质网(RER)合成、加工,再运输到高尔基体进一步修饰、包装形成分泌颗粒,经胞吐作用分泌到细胞外。
ECM 成分的加工:
- 糖基化修饰增加水溶性
- 转化酶(convertase)切除 C 端或 N 端肽段
- 高尔基体将前体多肽与转化酶一起包装进入分泌颗粒
ECM 糖链的合成特点:
- 胶原和弹性蛋白:羟赖氨酸残基的 O-糖基化是特有的,发生在 RER,而非高尔基体
- 其他 ECM 成分的糖基化与一般分泌蛋白相似,N-连接与 O-连接的寡糖链在高尔基体发生
- 透明质酸 HA 的合成在质膜上直接进行,不同于所有蛋白质的糖基化
- GAG 肽链上的起始糖基多数为木糖,合成后还要对糖链进行差向异构化和硫酸化加工修饰
二、细胞合成基膜
基膜(basal lamina, BL;basement membrane, BM):特化的 ECM,由上皮和内皮等细胞产生、紧靠细胞基底面的一层薄而坚韧的网膜,厚度 60~120 nm。
分布: 上皮、肌肉、结缔组织等;有相近组成的膜状 ECM 也包绕在肌细胞、神经鞘细胞(Schwann cell)及脂肪细胞周围(无底面)。肌细胞的基膜称肌膜(sarcolemma)。
基本成分:
| 成分 | 作用 |
|---|---|
| 层粘连蛋白(LN) | 结合细胞表面受体,是基膜组装的起始组织者和结构框架 |
| 胶原(Ⅳ 型为主) | 构成基膜的筛板 |
| 蛋白聚糖 | 硫酸乙酰肝素 HS 蛋白聚糖(渗滤素,perlecan),连接 LN 和 Ⅳ 型胶原的桥梁 |
| 内联蛋白(entactin/nidogen) | 连接 LN 和 Ⅳ 型胶原的桥梁 |
COL4A6 为Ⅳ型胶原的 α6 链编码基因 3 生物学功能:
- 将所属上皮细胞与其下方结缔组织隔开,阻止成纤维细胞与上皮细胞接触,却不阻止巨噬细胞、淋巴细胞和神经突起穿过
- 具有选择性通透屏障作用
- 决定上皮细胞和内皮细胞的形状与极性
- 调节细胞的增殖、分化与迁移
- 在胚胎发育、创伤愈合和组织修复中发挥重要作用
细胞与基膜间的相互作用:
- 细胞与基膜之间作用力与信息的双向传递:上皮细胞在底面通过半桥粒牢固锚定在基膜上;半桥粒通过质膜上的整联蛋白与 Ⅳ 型胶原和 LN 结合,另一方面与中间纤维结合
- 基膜是干细胞微龛(niche)或微环境的关键结构,调控干细胞的自我更新和分化
- 基膜与肿瘤细胞的转移metastasis:肿瘤细胞实现远端转移需三次穿过基膜
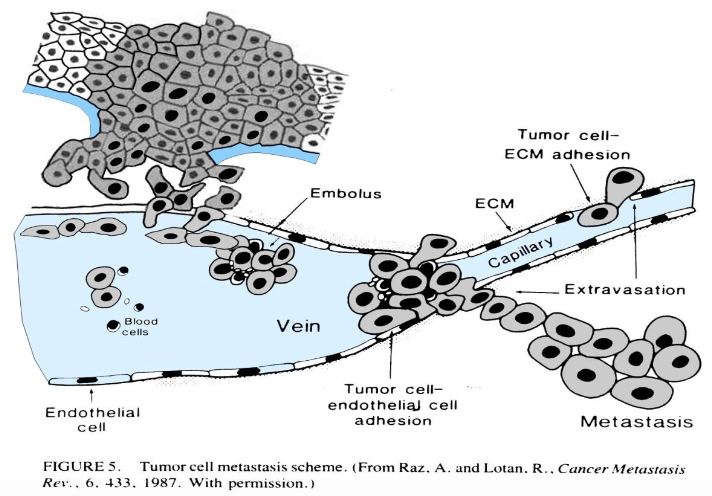
人工基膜(Matrigel):
- 从小鼠 EHS 瘤中提取,可制成人工基膜
- 主要成分与基膜相似,是体外研究肿瘤细胞侵袭能力时最接近体内情况的基膜成分
- 应用:促进各种细胞贴壁及生长分化;体外抑制肝细胞分化、维持肝细胞功能、增加细胞色素 P450 表达
基膜小结:
- 上皮细胞、内皮细胞等细胞底侧或外侧特化的网状细胞外基质层
- 由所属细胞分泌形成,主要组分为 Ⅳ 型胶原和层粘连蛋白
- 将所属细胞与其下方结缔组织隔开,具有选择性通透屏障作用
- 可诱导细胞极性形成并促进细胞分化,参与创伤修复和组织再生
三、ECM 的降解
- ECM 的细胞外酶促降解过程被严格调控
- 组织器官的多种功能活动都会伴随局部 ECM 的降解与重塑
- ECM 大分子降解经过多个步骤:细胞分泌和细胞表面的水解酶将大分子切割成小片段 → 降解片段被细胞吞噬或胞饮 → 在吞噬溶酶体中继续降解成氨基酸和单糖 → 被细胞重新利用
降解酶类:
- 蛋白质成分:基质金属蛋白酶(matrix metalloproteinase, MMP)家族、丝氨酸蛋白酶家族,二者联合作用催化肽链降解
- 糖链部分:糖苷酶催化降解
1. 基质金属蛋白酶(MMP)
- 一组结构上同源的内切蛋白水解酶的总称
- 催化活性依赖于锌等金属离子
- 能广泛降解胶原、非胶原糖蛋白和弹性蛋白等
| 类型 | 成员 |
|---|---|
| 胶原酶(collagenases) | MMP-1、-8、-13 |
| 明胶酶(gelatinases) | MMP-2、-9 |
| 基质溶素(stromelysins) | MMP-7、-26 |
| 膜型基质金属蛋白酶(MT-MMP) | MMP-14、-15、-16、-23、-24(可被 furin 活化的 MMPs) |
| 其他 MMPs | MMP-12、-19、-20、-27 |
2. ECM 降解的调节
- ECM 降解酶常以无活性的前体即酶原形式表达或分泌,需要时在局部微环境中活化
- 有些降解酶是膜蛋白,集中表达在细胞表面与 ECM 的接触区,如黏着斑
- 分泌到细胞外液的酶则通过与膜受体结合,募集到细胞表面特定区域,限制酶活性范围
- 细胞通常分泌多种水解酶抑制剂,防止正常条件下 ECM 被降解;在缺氧、酸中毒、ROS 等病理条件下,抑制剂失活
3. 胶原的降解
- 在特殊条件下(胚胎发育、病理如炎症反应、创伤愈合)发生,并伴有胶原类型的改变
- 必须先被 MMPs 中的胶原酶切割才能降解,不同类型的胶原酶对底物胶原类型有选择性
- 分泌的胶原酶通常为无活性酶原,经蛋白酶(如纤溶酶及激肽释放酶)切割后变为有活性的胶原酶
参与胶原分解的酶类:
- 胶原酶:主要作用于 Ⅰ、Ⅱ、Ⅲ 型胶原(MMP-1 由滑膜细胞产生;MMP-13 由软骨细胞产生)
- 明胶酶:作用于 Ⅳ、Ⅴ、Ⅶ、Ⅺ 型胶原(肿瘤细胞产生明胶酶,特异性作用于 Ⅳ 型胶原,破坏基膜,为侵袭、转移开辟道路)
4. 蛋白聚糖 PG 的降解
- 先在细胞表面或微环境中的蛋白酶和内切糖苷酶作用下切割为多糖与多肽片段
- 再通过胞吞作用进入溶酶体,在多种溶酶体酶催化下彻底降解
- GAG 中的硫酸基需要硫酸酯酶(sulfatase)催化水解脱硫酸,脱硫酸常为 GAG 糖链降解的限速步骤
降解细胞外基质的各种酶:
| 种类 | 主要底物 |
|---|---|
| MMPs-胶原酶 | 纤维性胶原 |
| MMPs-明胶酶 | 明胶、Ⅳ 型、Ⅴ 型胶原 |
| MMPs-基质溶素 | 纤黏连蛋白、层黏连蛋白、蛋白多糖 |
| 弹性蛋白酶 | 弹性蛋白 |
| 组织蛋白酶 | 组织蛋白 |
| 尿激酶纤溶酶原活化因子(uPA) | Ⅳ 型、Ⅴ 型胶原 |
| 类肝素酶(heparanase) | 硫酸类肝素 |
四、ECM 与相应的细胞膜受体
- 整联蛋白(integrin):ECM 的主要受体
- DDRs(discoidin domain receptor tyrosine kinases):受体酪氨酸蛋白激酶超家族成员
- CD44
(一)整联蛋白(integrin)
- 一大类细胞粘附分子
- 跨膜糖蛋白
- α 和 β 亚基非共价键组装成异二聚体
- β 亚基胞内区与细胞骨架结合
- 多种整联蛋白识别 ECM 的 RGD 序列
- 介导细胞-细胞及细胞-细胞外基质间的相互作用
- 连接细胞内骨架系统与细胞外骨架系统(ECM)的跨膜桥梁
- 介导细胞在 ECM 上的黏附及基膜与细胞的连接
构成:
- 18 种 α 亚基、9 种 β 亚基,组合构成至少 24 种整联蛋白
- 不同整联蛋白对配体特异性不同:
- 单特异性:α5β1 为 FN 受体;α6β1、α6β4 为 LN 受体
- 多特异性:αvβ3 的配体有 LN、FN 等
- 一种 ECM 蛋白可有若干种整联蛋白受体:FN 有 α3β1/α4β1/α4β7/α5β1/αvβ1/αvβ3/αvβ5/αvβ6/α2bβ3 共 9 种;LN 有 α1β1/α2β1/α3β1/α6β1/α6β4/α7β1/α9β1/αvβ3/α2bβ3 共 9 种
- α3β1、α5β1、αvβ1、αvβ3、αvβ5、αvβ6、αb2β3 等均识别 RGD 三肽
活化状态:
| 状态 | 特点 |
|---|---|
| 活化状态 | αβ 亚基伸展、解折叠,胞外区与配体亲和性高;穿膜区和胞内区的 α、β 链相互分离,暴露出与 Talin、FAK 等蛋白的结合部位,引起黏着斑和微丝骨架及信号向下游传递 |
| 非活化状态 | αβ 亚基折叠,胞外区与配体亲和性低;穿膜区和胞内区的 α、β 链相互接触 |
信号通路: 整联蛋白胞外区与配体分子结合 → 构象改变而活化 → β 亚基胞内区与细胞骨架分子 Talin(踝蛋白)的亲和性增强 → 启动细胞内骨架组装 → 一系列下游事件,调控细胞黏附、铺展、迁移、存活和增殖。
(二)黏着斑(focal adhesion, FA)
整联蛋白介导的细胞粘附于 ECM 的动态结构。
- 呈动态的组装与去组装,主要分子包括:
- 整联蛋白:启动分子,发生丛集(clustering),产生尼龙搭扣效应(velcro principle)
- 黏着斑激酶(FAK)
- Src 激酶家族
- 微丝骨架体系相关蛋白:踝蛋白(talin,主要结构元件)、纽蛋白(vinculin)、桩蛋白(paxillin)、α-辅肌动蛋白(α-actinin)、张力蛋白(tensin)
- 黏着斑成为 ECM-整联蛋白-微丝骨架的结构连接
- 通过黏着斑实现胞外信号内传
- 组装过程中 FAK 发挥关键作用:
- 非膜受体型酪氨酸激酶
- 丛集的 Integrin 和 Talin 等招募并活化 FAK,FAK 激活下游分子包括 Src 激酶,形成 FAK-Src 复合物
- 继而激活下游信号通路,调控细胞形状、迁移、存活、增殖和分化等
(三)ECM 的受体 DDR
DDRs(discoidin domain receptor tyrosine kinases)为受体酪氨酸蛋白激酶超家族成员,包括 DDR1 和 DDR2(Frontiers in Cell and Developmental Biology, 2021, 9, 747314)。
第三节 ECM 对细胞生命活动的影响
一、对细胞形态结构和极性的影响
- ECM 相当于细胞的外骨架,通过细胞表面 ECM 受体传导,与细胞骨架连成整体,为机体从细胞构建组织器官提供牢固基础
- ECM 通过缓冲、保水、赋予机械力抗性和黏弹性等作用,使细胞维持正常形态结构,抵抗多种理化因素干扰
- 可诱导细胞连接和细胞极性的形成,使各种组织器官中的细胞获得所需的形状和空间极化方向
二、对细胞功能的调控
调控细胞的存活与增殖:
- 除成熟血细胞外,正常真核细胞只有在一定的细胞外基质上黏附并铺展才能生长和增殖;一旦脱离基质成为球形或悬浮状态,便停止生长并通常引发凋亡
- 锚定依赖性生长(anchorage-dependent growth):这种依赖于细胞外基质生长的特性
- 失巢凋亡(anoikis):细胞脱离基质后引发的凋亡
整合信号:
- 不溶性 ECM-整联蛋白介导的信号通路与可溶性生长因子-RTK 受体信号通路共同调控细胞增殖
- 大多数正常细胞,只有当 Ras 同时受到来自生长因子受体和整联蛋白两方面的刺激时,才能使 MAPK 活化达到引起下游基因转录所需的阈值,继而促进细胞从 G1 期进入 S 期
- 这解释了大多数正常细胞的锚定依赖性生长
ECM-integrin-FAK 通路激活胞内三条信号通路:
| 通路 | 功能 |
|---|---|
| ECM-integrin-FAK—Cas-Crk—Rac/Rho/Cdc42 | 启动细胞骨架系统组装,调控细胞黏附、铺展和迁移 |
| ECM-integrin-FAK—PI3K/AKT | 调控细胞存活和凋亡 |
| ECM-integrin-FAK-Src-Grb2-Sos-Ras-Raf-MEK-MAPK—Cyclin D | 调控细胞增殖 |
肿瘤细胞失去"失巢"现象,在软胶悬浮状态仍能存活、生长,称为定着不依赖性生长。
三、对细胞分化的调控
与特定 ECM 作用后,某些类型的细胞撤出细胞周期,进行形态与功能的分化:
- 成肌细胞:在 FN 基质上增殖并保持未分化表型;在 LN 基质上停止增殖、分化、融合为肌管
- 血管内皮细胞:在 Ⅰ 或 Ⅲ 型胶原上呈单层式生长;在含 LN、Ⅳ 型胶原和蛋白聚糖的人工基膜上停止分裂,分化形成有腔的毛细管样结构
ECM 可决定干细胞的分化方向:
- 在 Ⅳ 型胶原和 LN 基质上 → 呈片层极性排列的上皮细胞
- 在 Ⅰ 型胶原和 FN 基质上 → 成纤维细胞
- 在 Ⅱ 型胶原及软骨粘连蛋白的基质上 → 软骨细胞
四、对细胞迁移的调控
- ECM 可控制细胞迁移的方向与速度,为迁移提供"脚手架"
- 趋化因子与 ECM 结合形成浓度梯度,诱导迁移细胞极化、伸出伪足、形成细胞前沿
- 细胞前沿一方面分泌 MMPs 降解 ECM、消除前进阻碍,另一方面不断组装黏着斑和应力纤维,推动伪足迁移
- 细胞后端黏着斑和应力纤维拆卸,物质回收并流向前端循环利用,细胞向前移动
- 透明质酸与透明质酸酶的消长与形态发生过程密切相关:胚胎发育早期 HA 合成旺盛,促进细胞增殖与迁移;发育晚期 HA 合成减少、降解增加,细胞迁移和增殖逐渐停止
ECM/Integrin/FAK 信号转导途径与 RTK 信号途径存在 cross talk。
第四节 ECM 与疾病
ECM 相关疾病的发生环节:
- ECM 蛋白质的基因结构或表达异常
- ECM 成分的合成、加工修饰、组装、分泌、细胞外交联异常
- ECM 类型、比例、空间排列方向失常
- 受体与 ECM 的相互作用异常
- ECM 合成与降解动态平衡紊乱
一、ECM 与脏器纤维化
- 脏器实质细胞损伤,炎症细胞浸润,间质细胞过度增生,分泌大量 ECM 成分的同时产生大量 MMPs 和组织蛋白酶等
- 若损伤和应激反应不能缓解和消退,损伤反复发生,损伤的实质细胞由间质细胞取代
- 间质细胞产生大量 Ⅰ/Ⅲ 型胶原,失去正确的空间方向和组成比例,导致器官出现系统性与不可逆的结构紊乱
二、ECM 与肿瘤的发生发展
整联蛋白参与肿瘤发生的多个环节,影响肿瘤的生长、侵袭和转移:
- α5β1 识别 RGD 序列
- 在结肠癌、乳腺癌、卵巢癌等多种肿瘤组织高表达,在肿瘤发生、侵袭、转移中发挥作用
- 抑制 α5β1 表达可降低恶性肿瘤的成瘤性和转移性,提高患者生存率
- RGD 基序与生物探针偶联可对肿瘤进行可视化影像学检查
- RGD 基序与同位素或化疗药物偶联,进行靶向抗癌治疗
- 间质瘤、肾母细胞瘤、乳腺癌及神经胶质细胞瘤中透明质酸增多
- 肿瘤干细胞高表达透明质酸受体 CD44 和 CD44 变体,引起肿瘤侵袭、转移
三、ECM 与某些遗传病的发生
| 疾病 | 机制与表现 |
|---|---|
| 成骨不全(OI) | 见胶原疾病 |
| 马方综合征(Marfan's syndrome) | FBN1 基因突变所致常染色体显性遗传病;四肢过长、蜘蛛指、关节松弛、虹膜透明、心脏瓣膜关闭不全、主动脉扩张;皮肤弹性异常、出现凸条纹。FBN1 编码产物原纤蛋白 1 是包绕在弹性蛋白外周的糖蛋白,其缺陷可导致弹性纤维缺失 |
| 黏多糖贮积症(MPS) | 常染色体隐性遗传;特定的糖苷酶或硫酸酯酶遗传性缺乏,大量黏多糖(糖胺聚糖)蓄积在次级溶酶体,导致代谢障碍性疾病;主要累及全身结缔组织(皮肤、韧带、动脉、心瓣膜、肝肺等);表现:身材矮小、皮肤粗糙、骨骼变形、肝脾肿大、角膜混浊、智力障碍 |
四、ECM 与炎症和免疫失调
- 炎症因子和免疫因子可通过与 ECM 结合,建立固相化的因子浓度梯度,延长因子半衰期,引导炎症细胞和免疫细胞向浓度高的炎症中心迁移
- LN 与其受体 α6β1 整联蛋白的相互作用可促进中性粒细胞进入组织
- 胶原受体 DDR1 的表达可促进巨噬细胞浸润动脉粥样硬化斑块
- 炎症也可导致 ECM 降解,某些 ECM 大分子降解片段反过来影响炎症和免疫反应
五、ECM 与衰老
- ECM 分子间交联不断积累,造成胶原纤维和弹性纤维的密度、硬度增加
- GAG 合成减少,失去保水性和黏弹性,出现皮肤失去弹性、韧带和肌腱变硬、僵化等
- MMPs 的分泌增加,使 ECM 发生重塑
ECM 重点内容
- 细胞外基质的主要分子组成和功能
- 胶原的合成、装配过程
- 基膜及其功能
- 整联蛋白及其介导的信号转导途径
- ECM 与疾病(胶原病和肿瘤)
思考题:
- Q1:蛋白聚糖和糖蛋白的区别?
- Q2:ECM 是不是包含全部的蛋白聚糖?